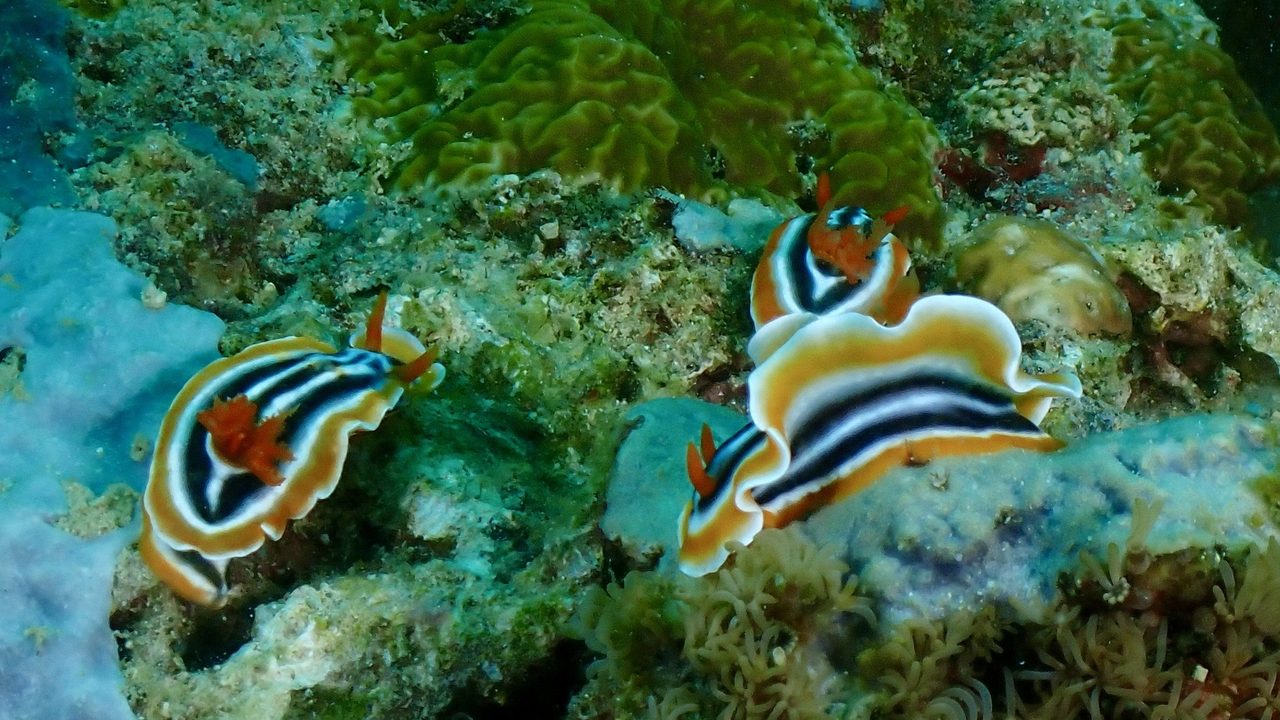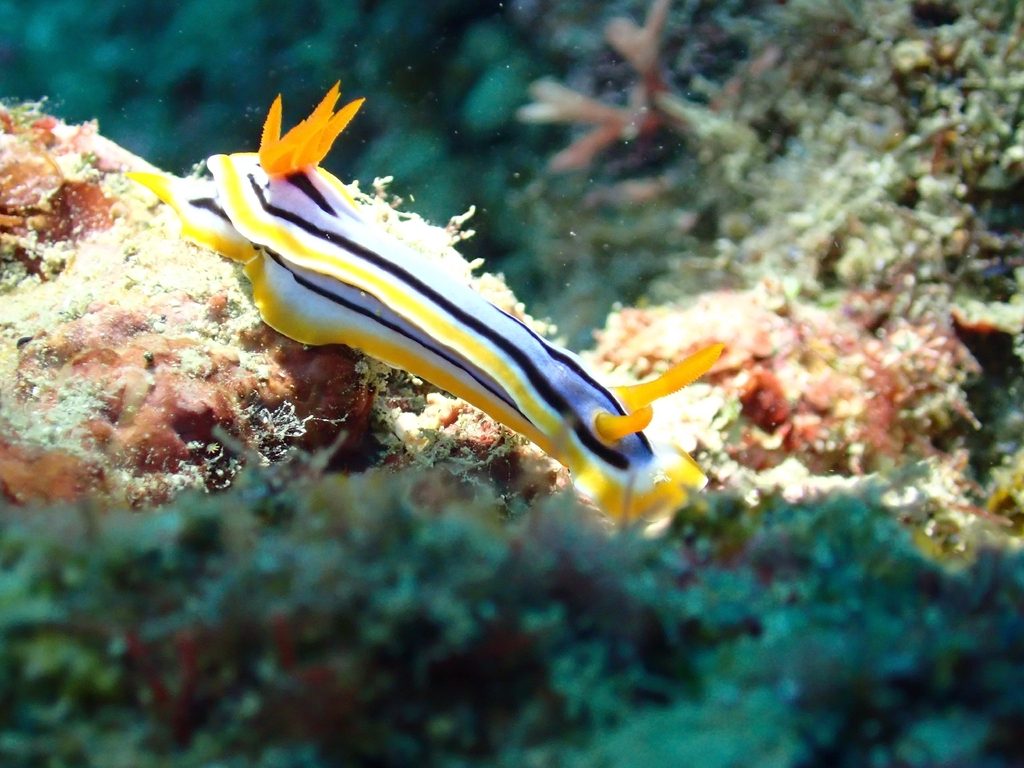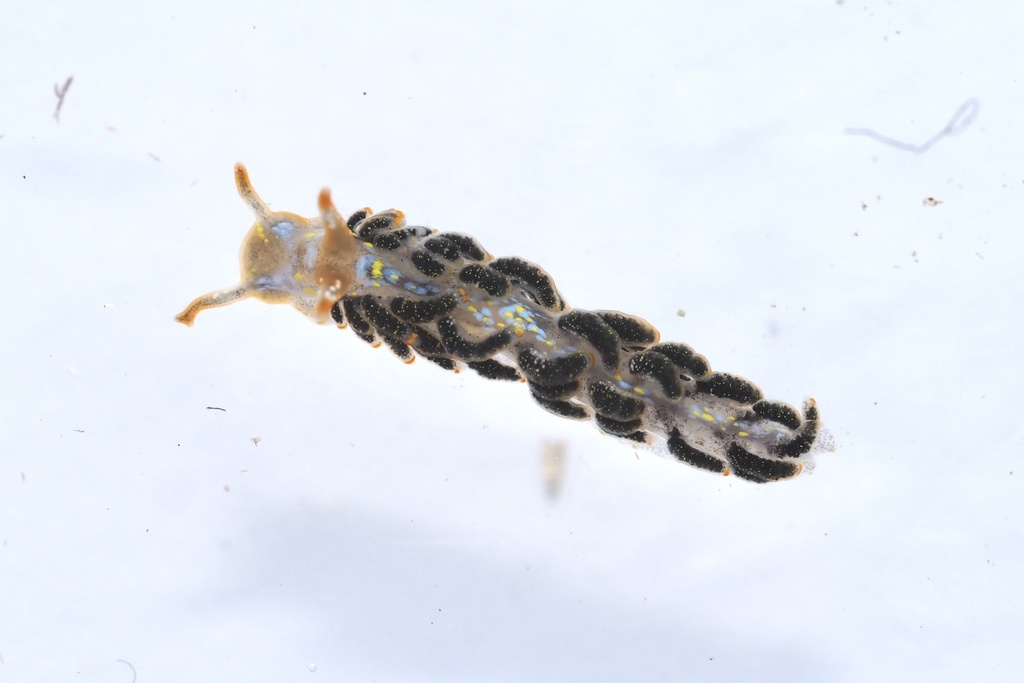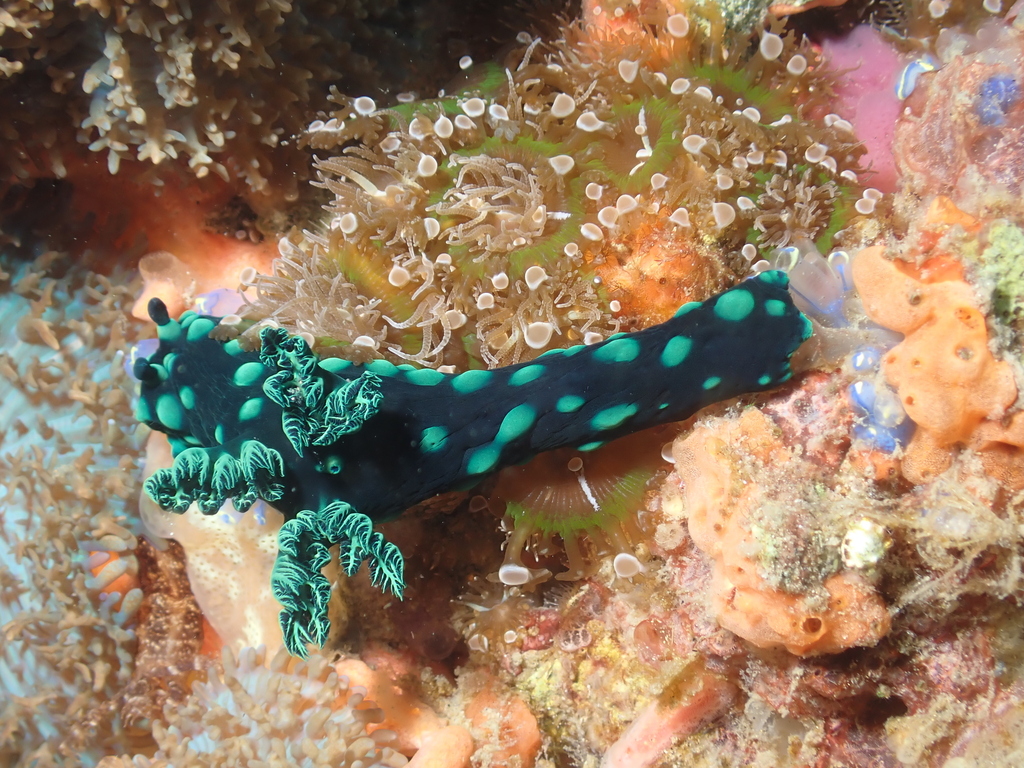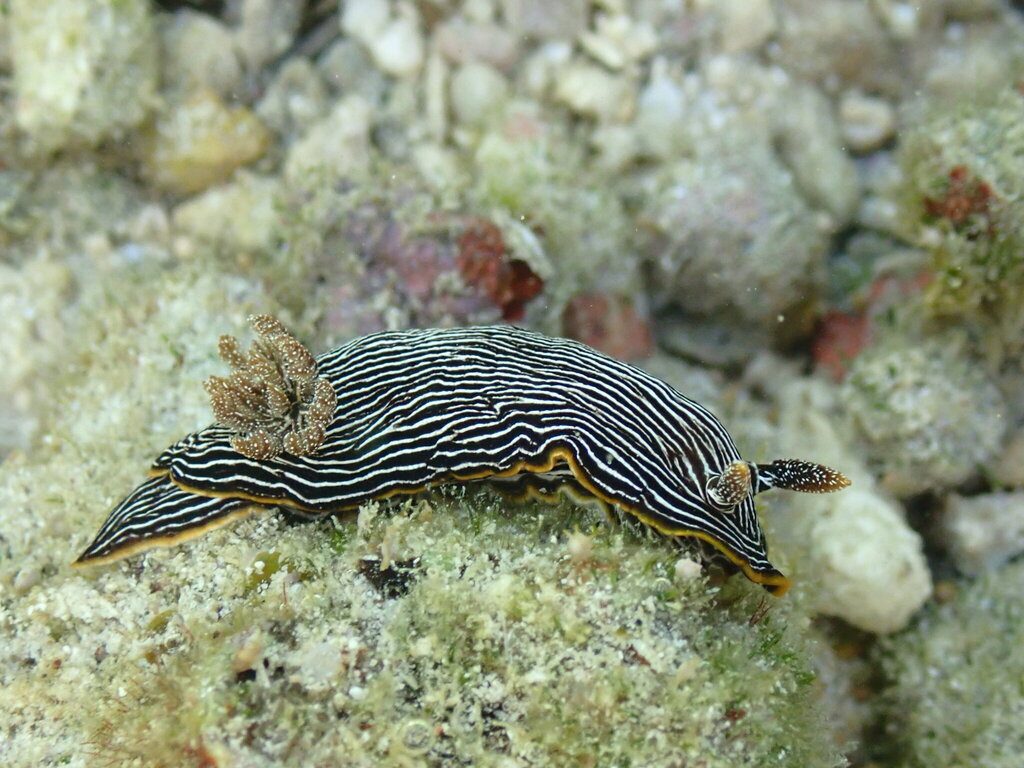
从拇指盖大的荧光小精灵,到能长到 30 厘米的巨型海兔 —— 全部来自潜水员与水下摄影师的真实记录。


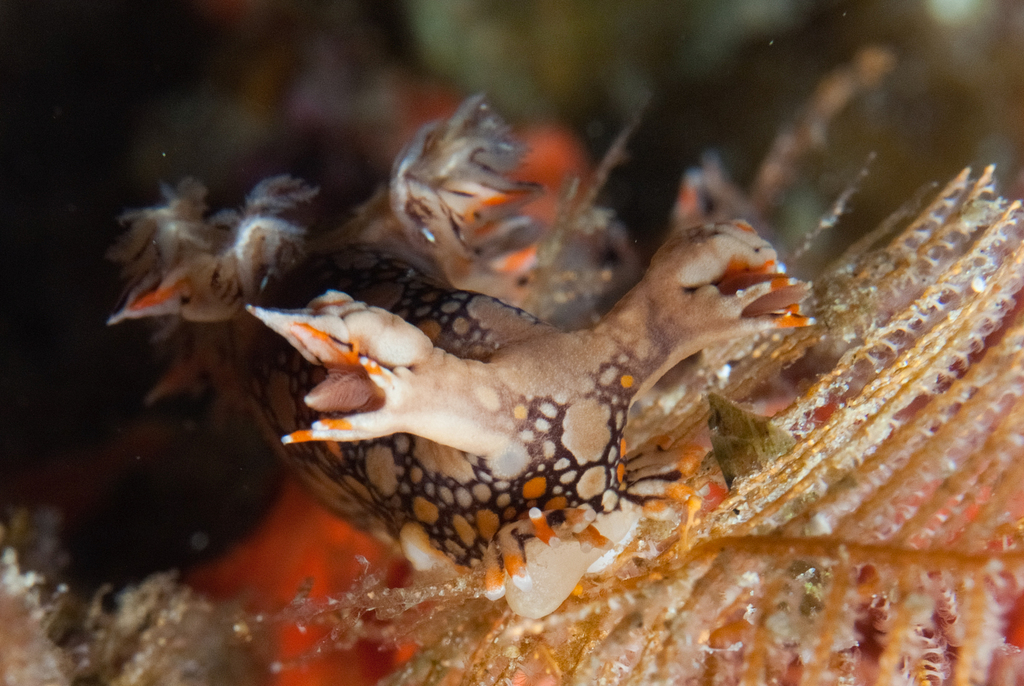

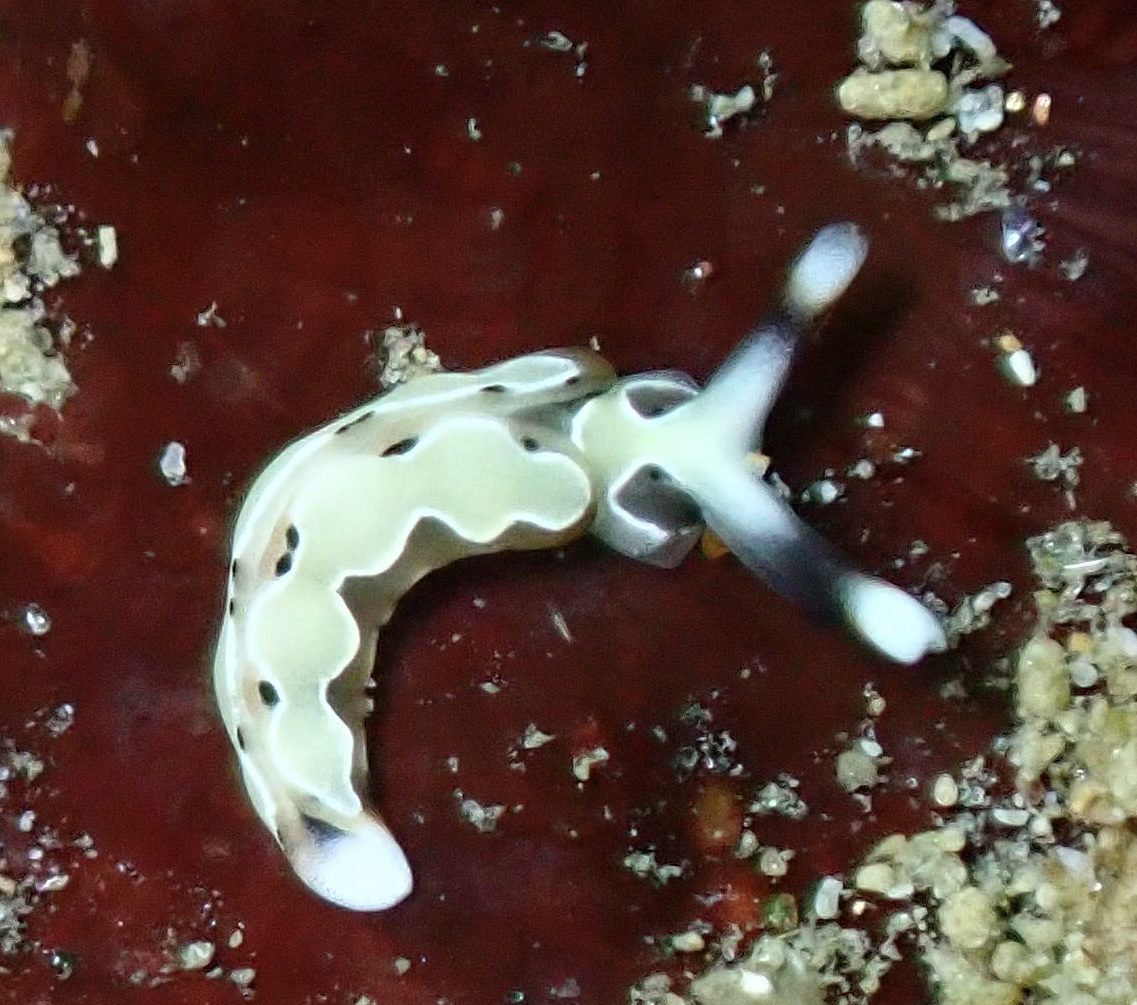
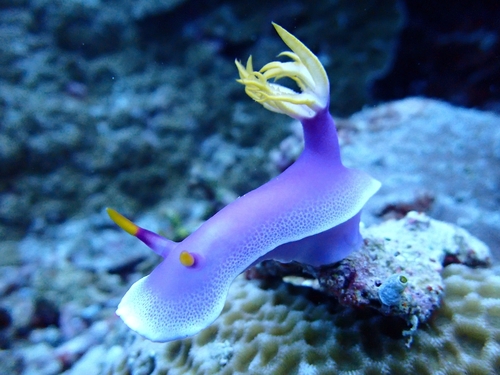
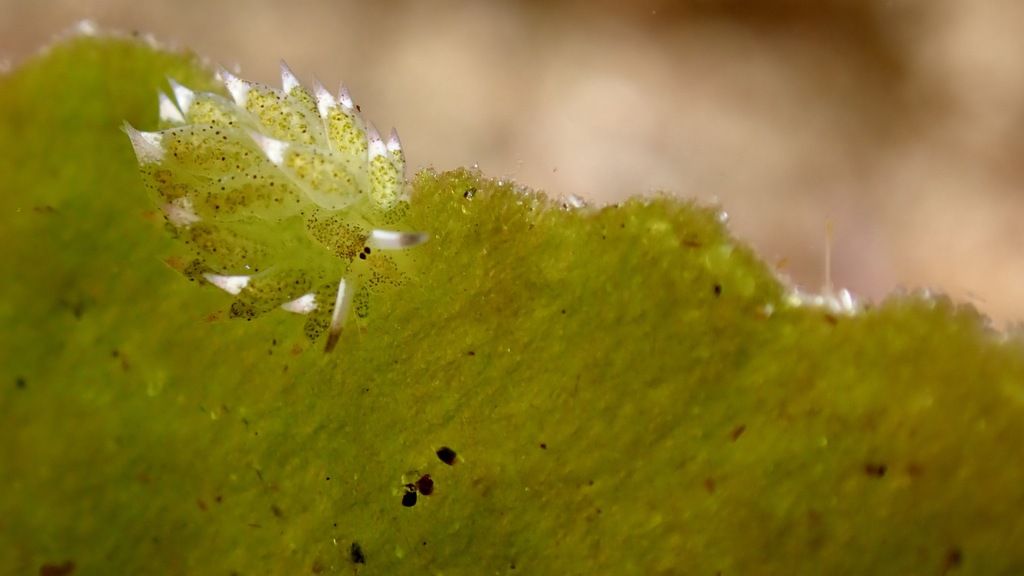
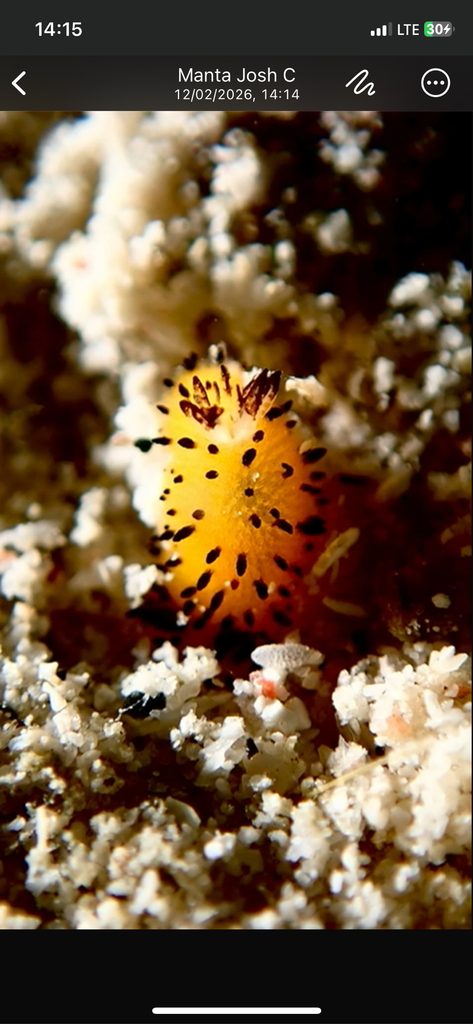
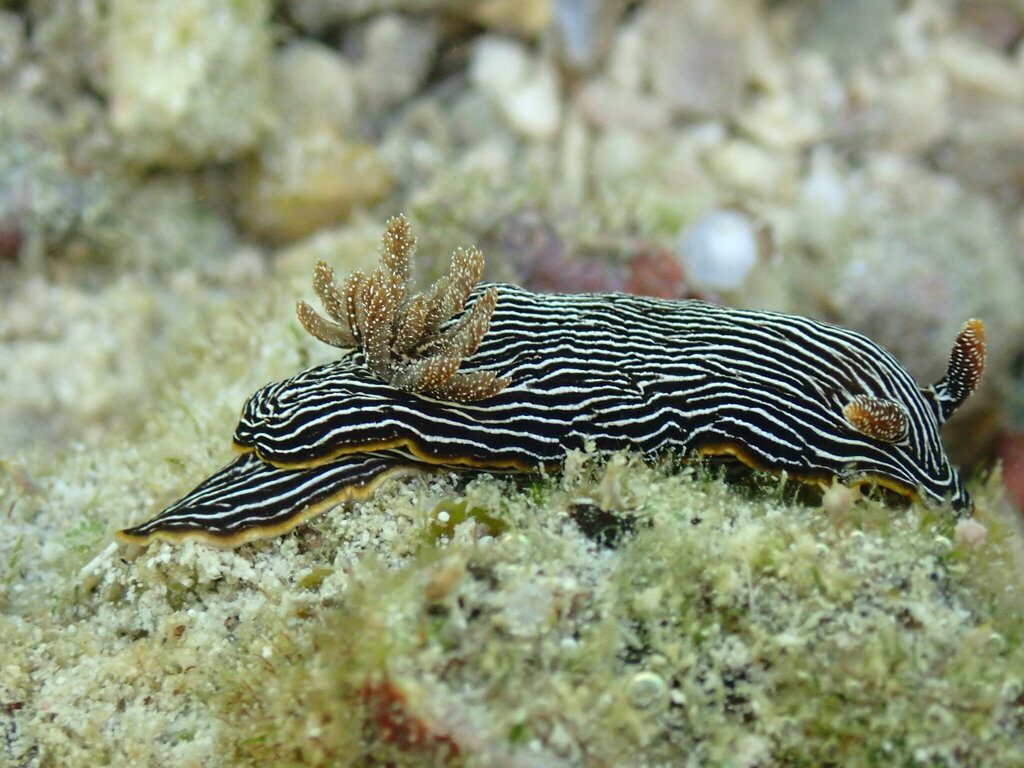
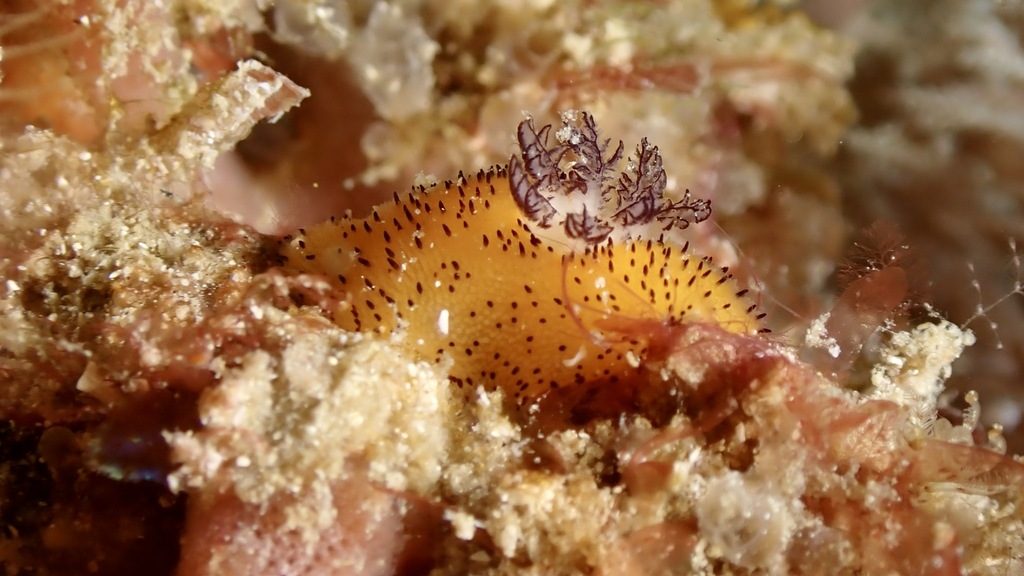
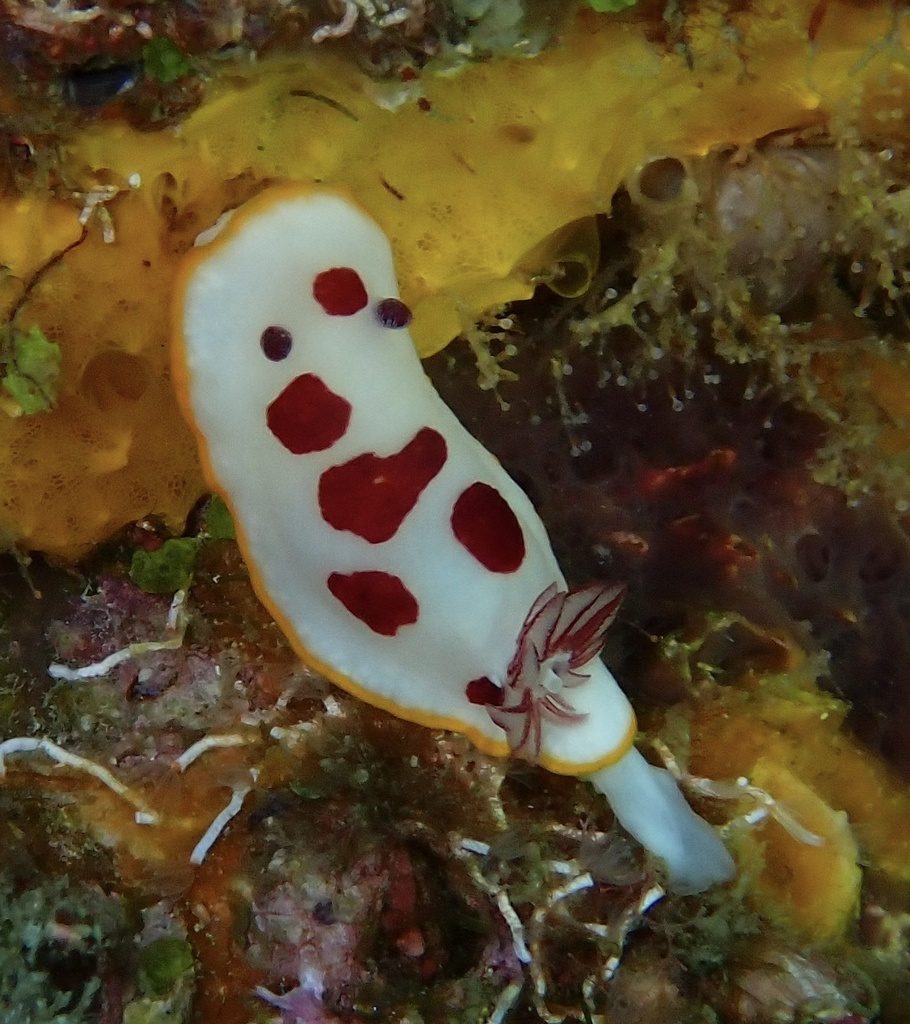
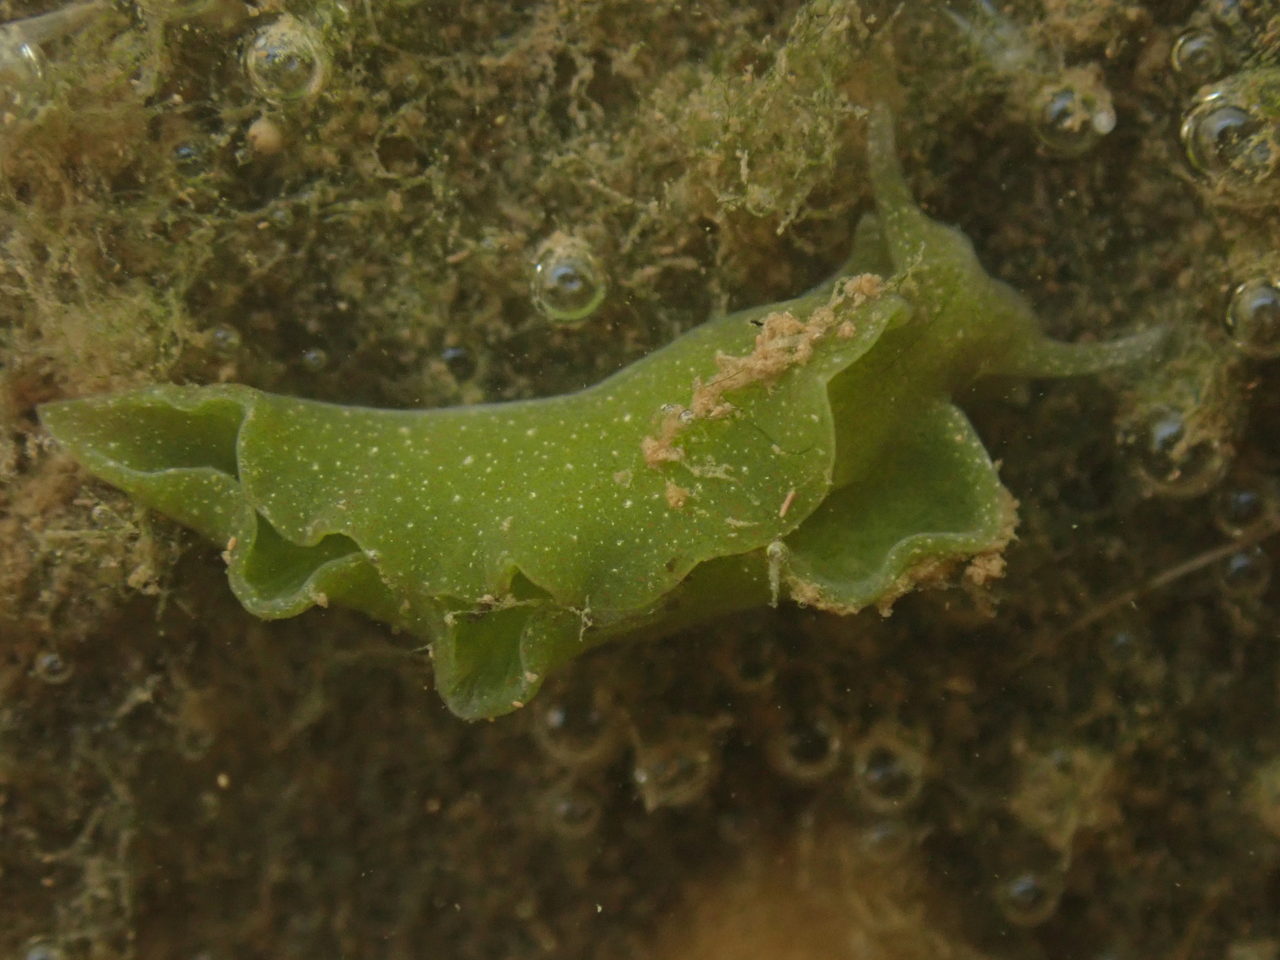
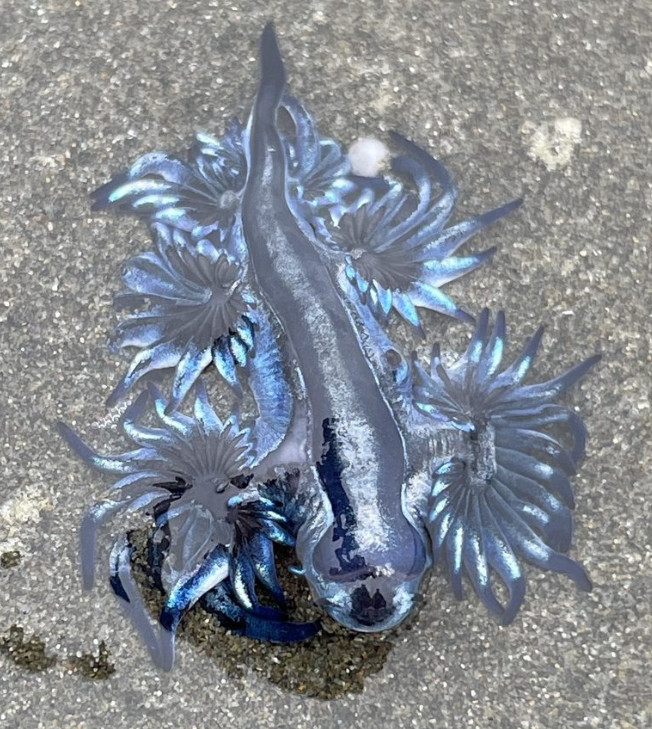

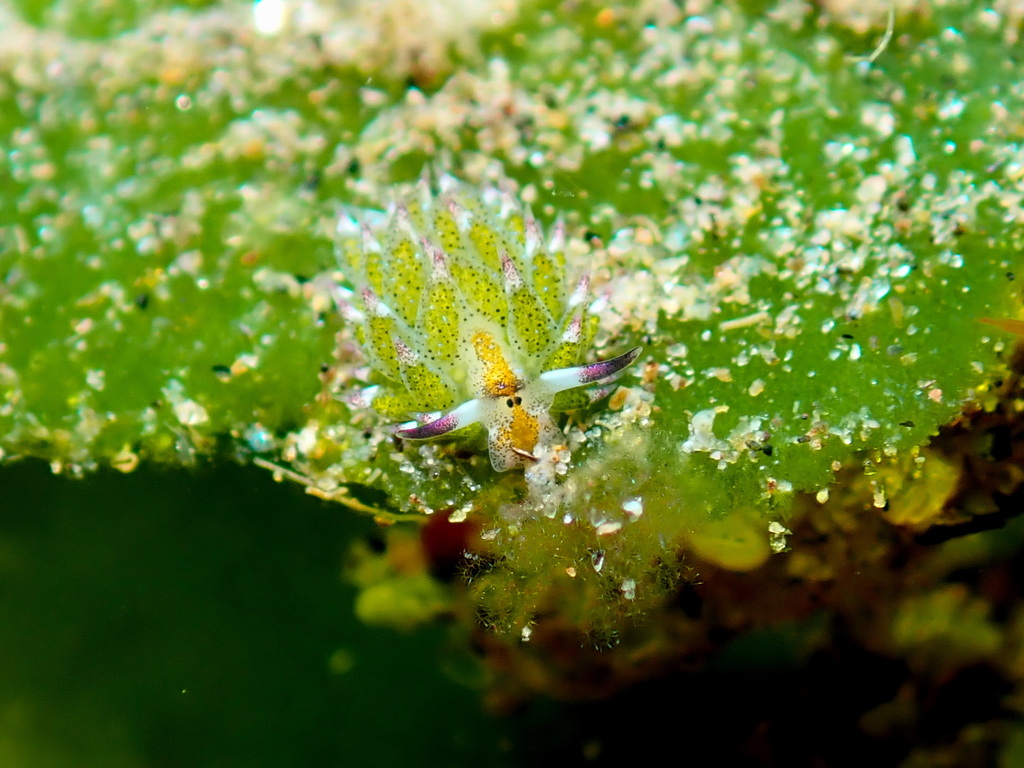
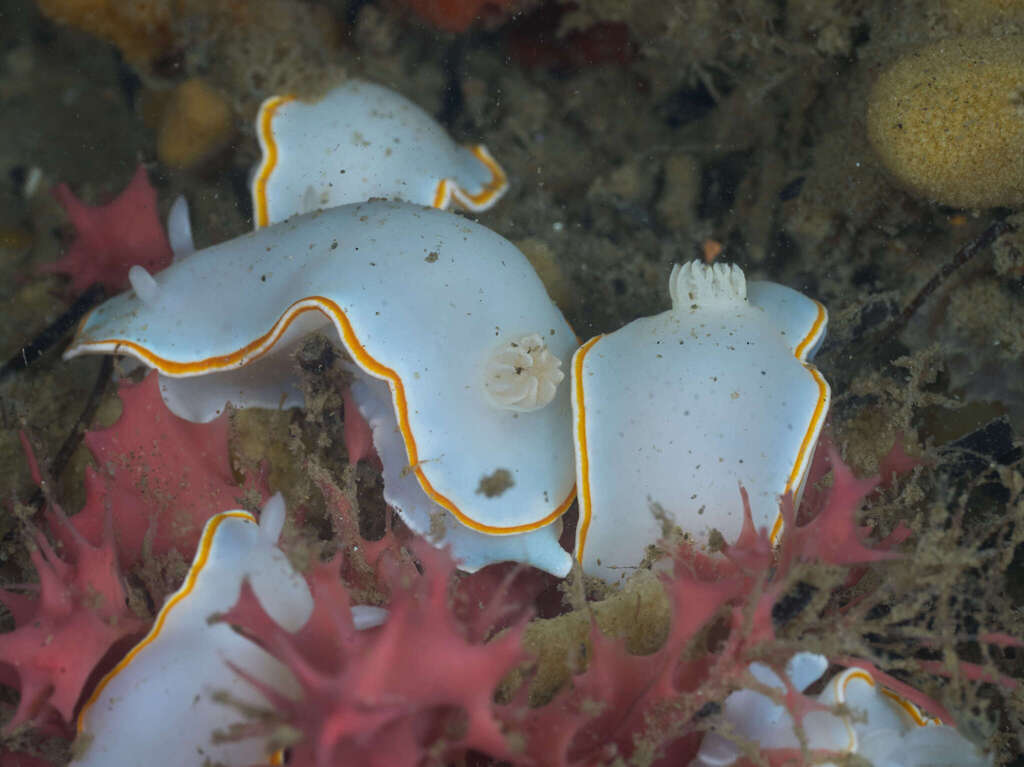
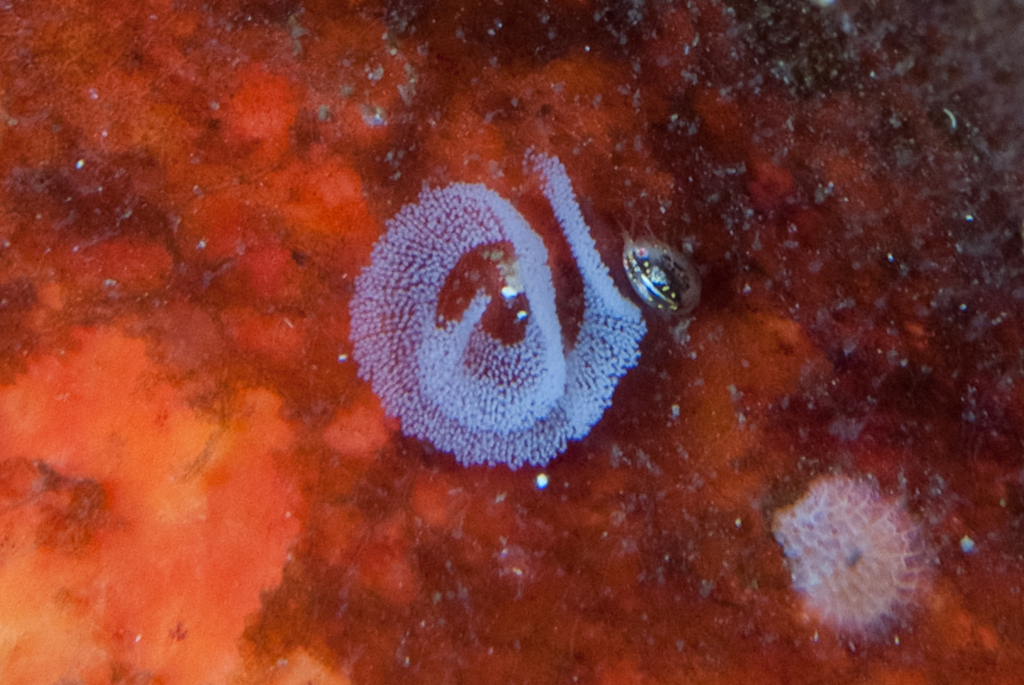
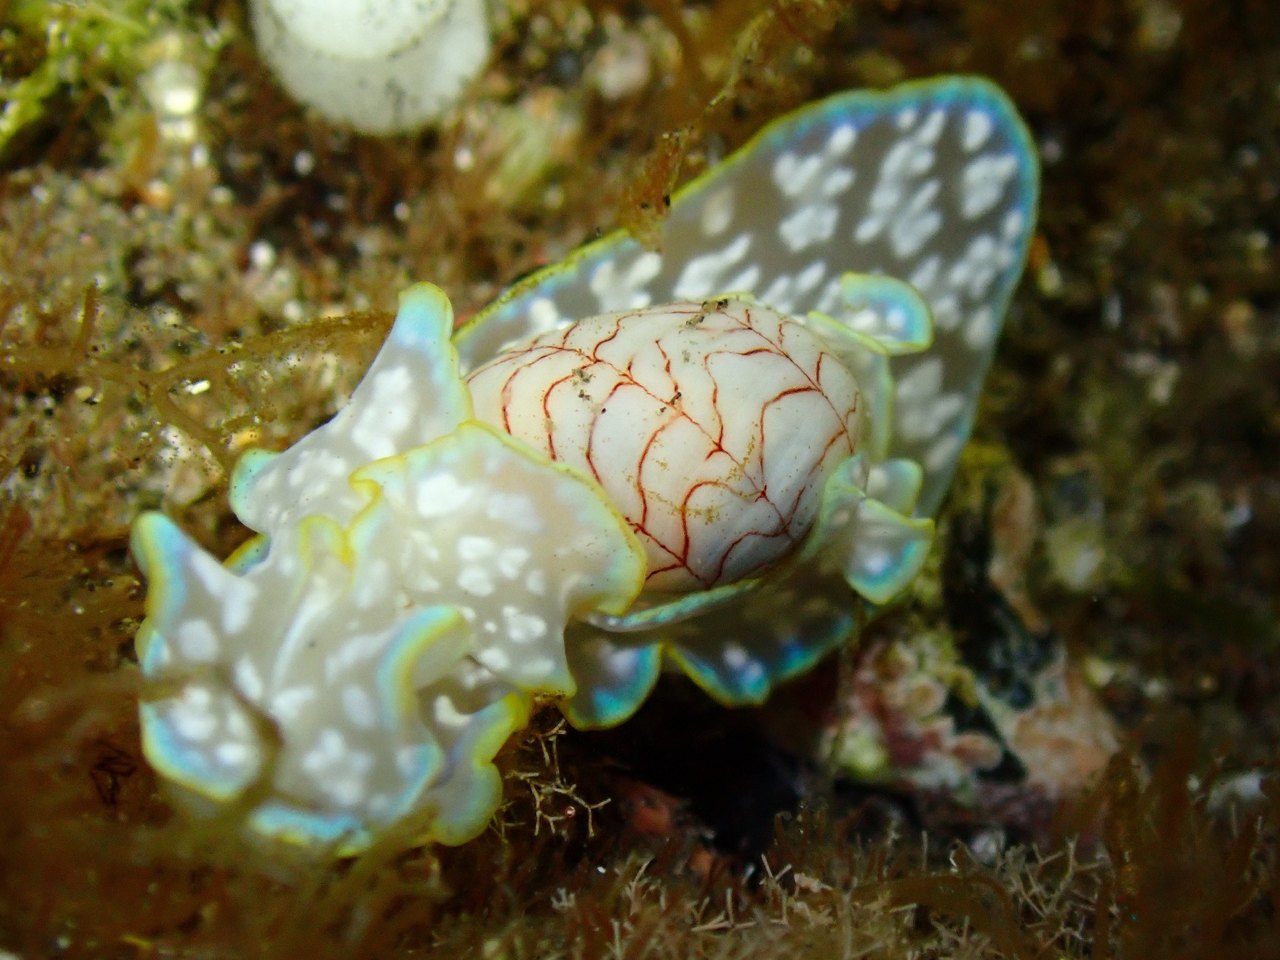
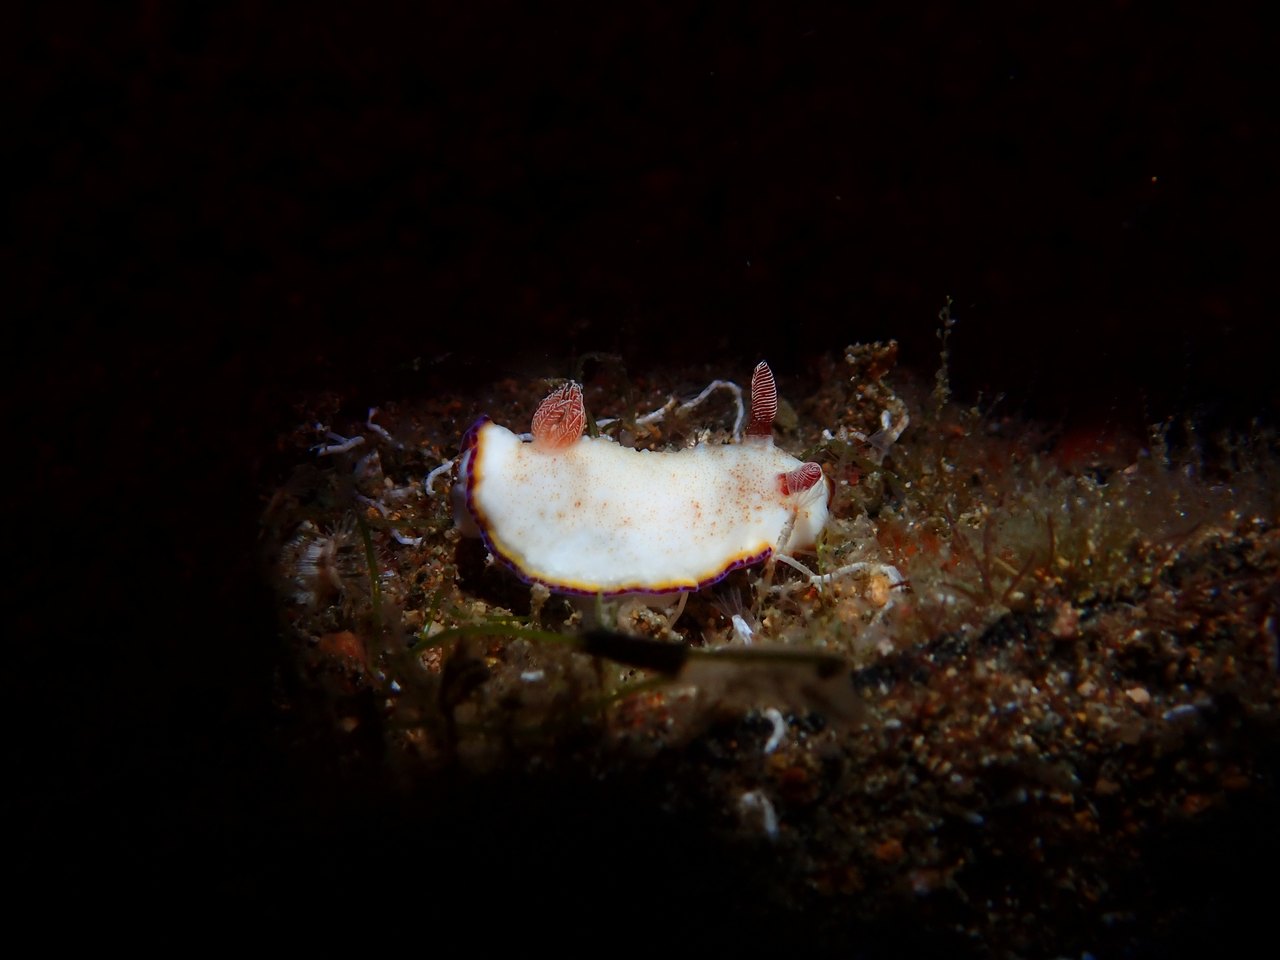
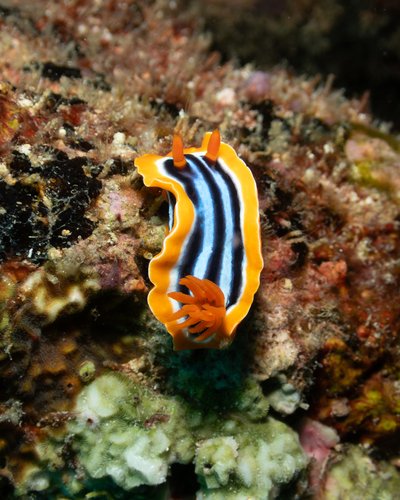
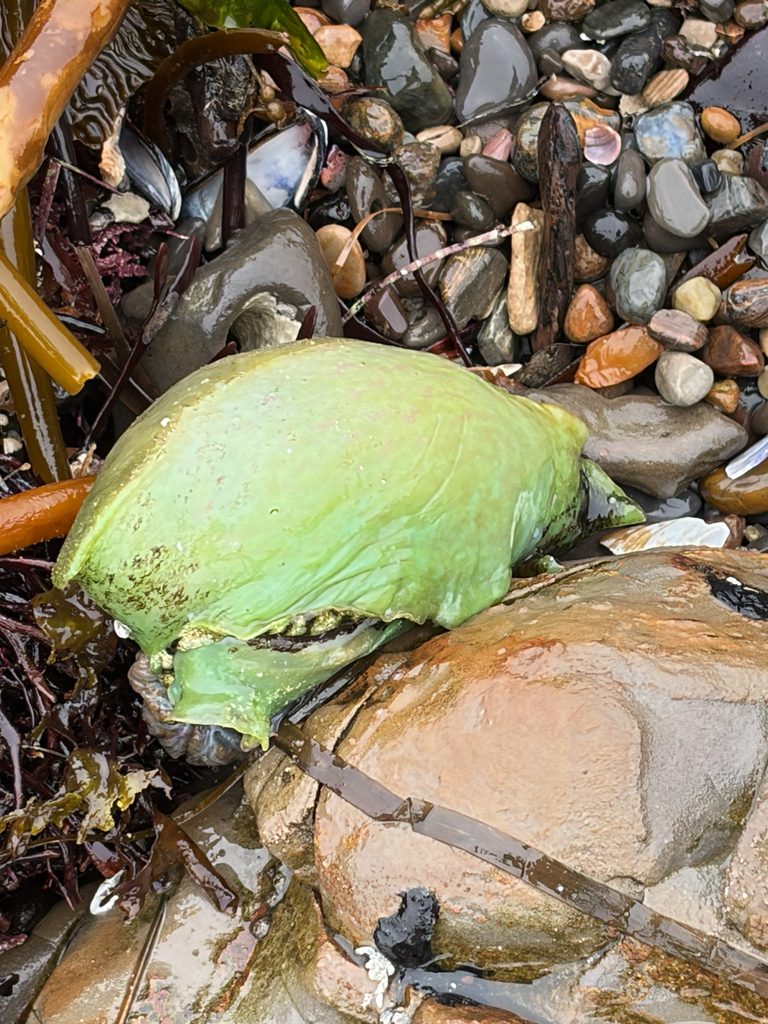
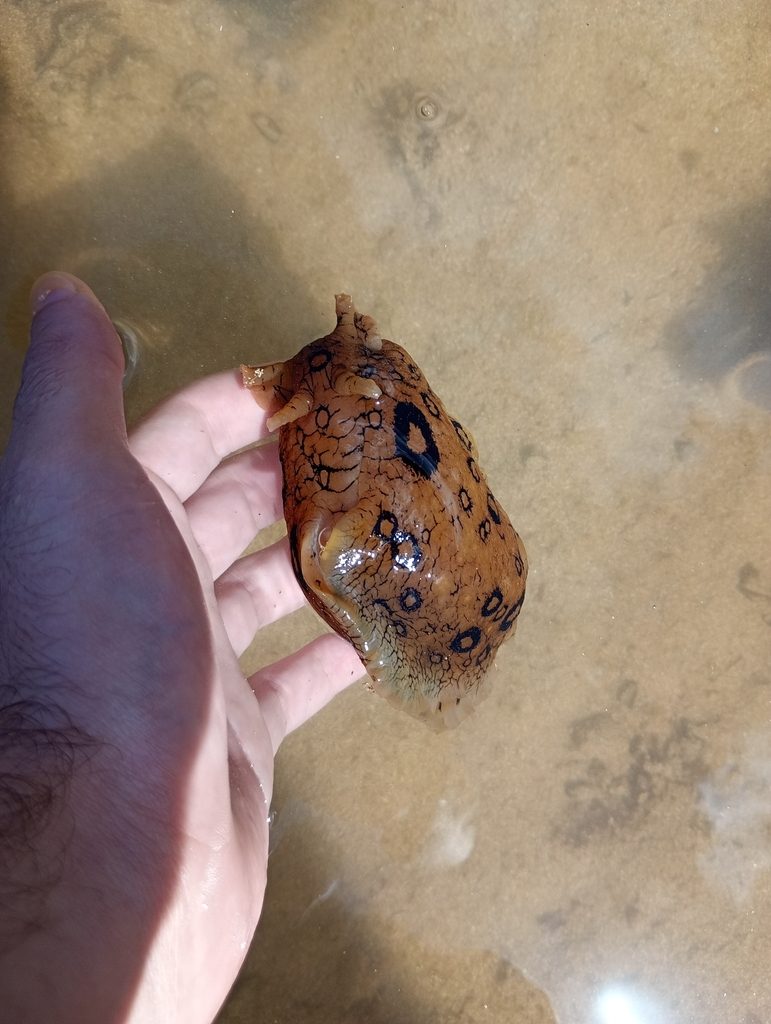
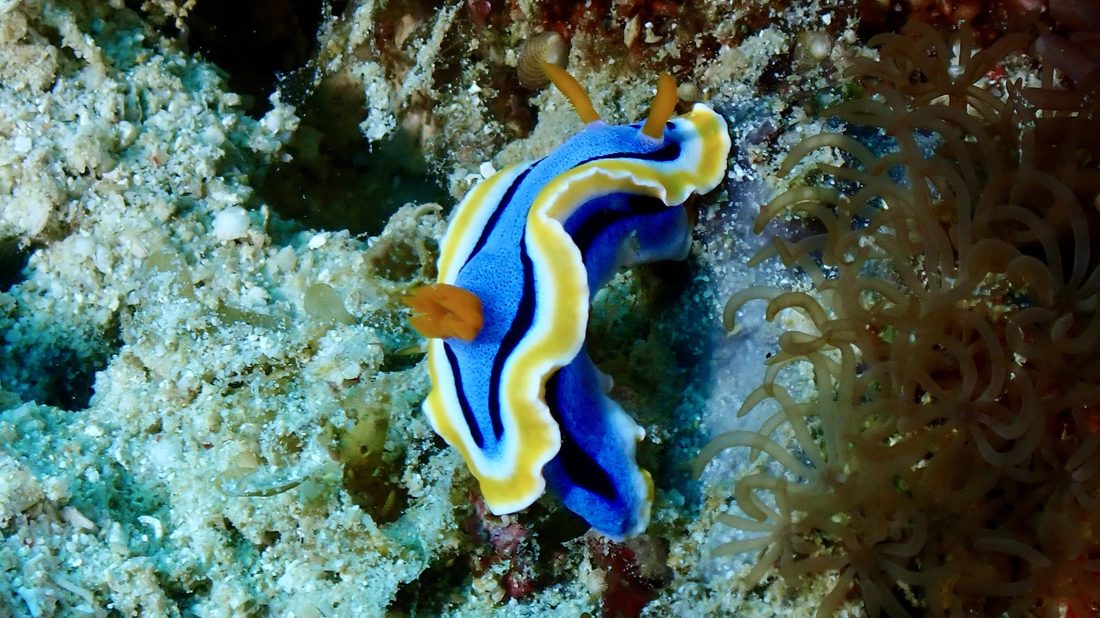
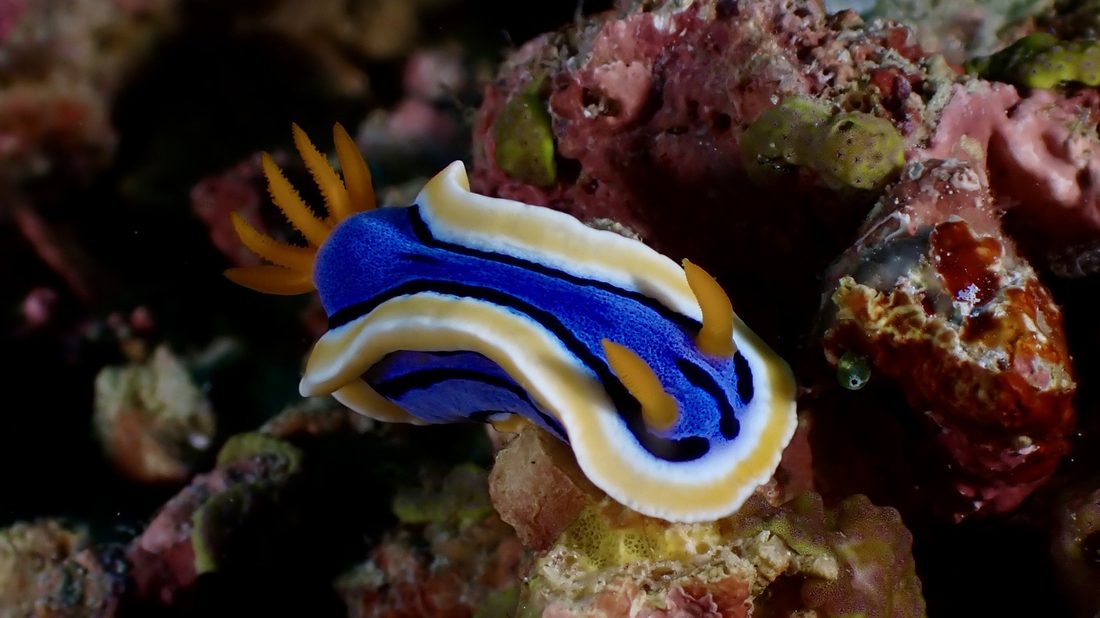
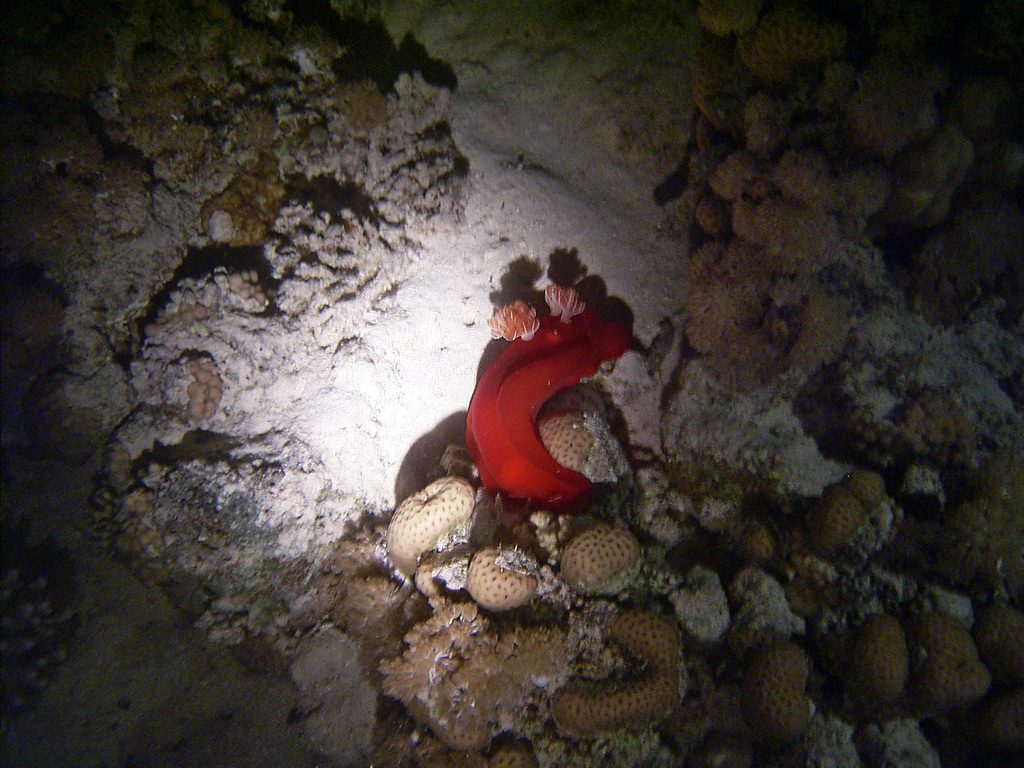
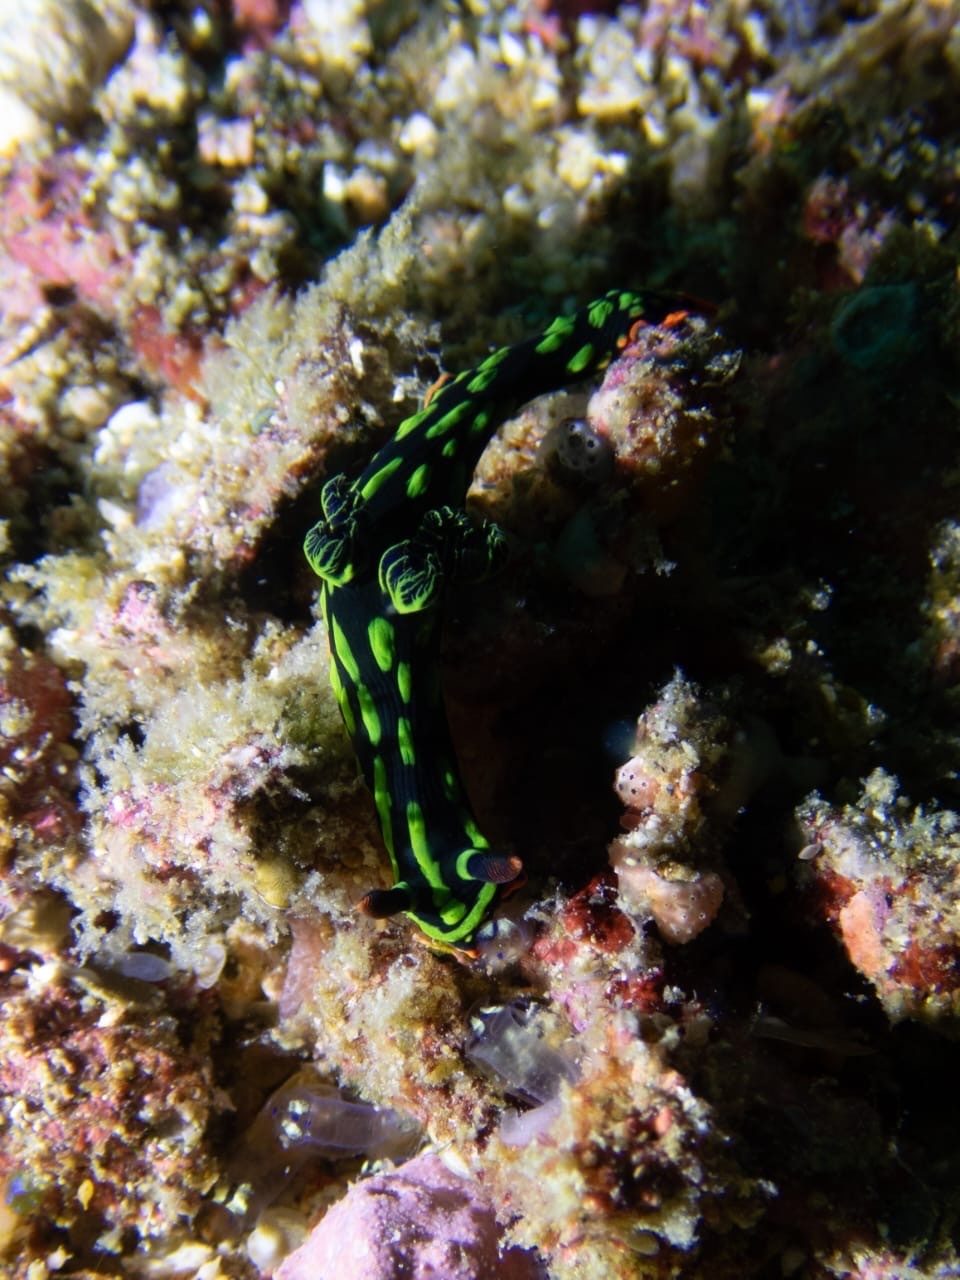
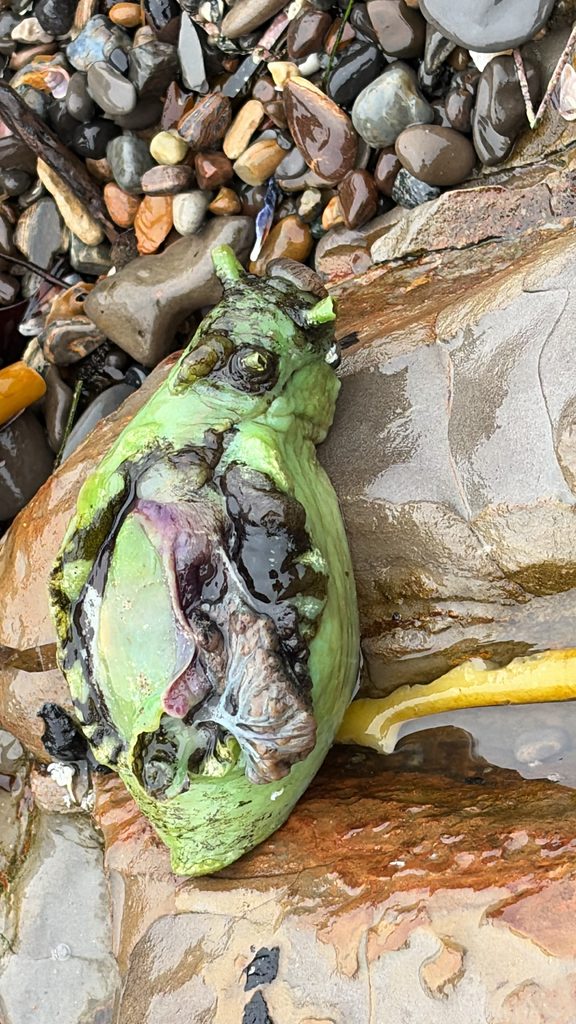


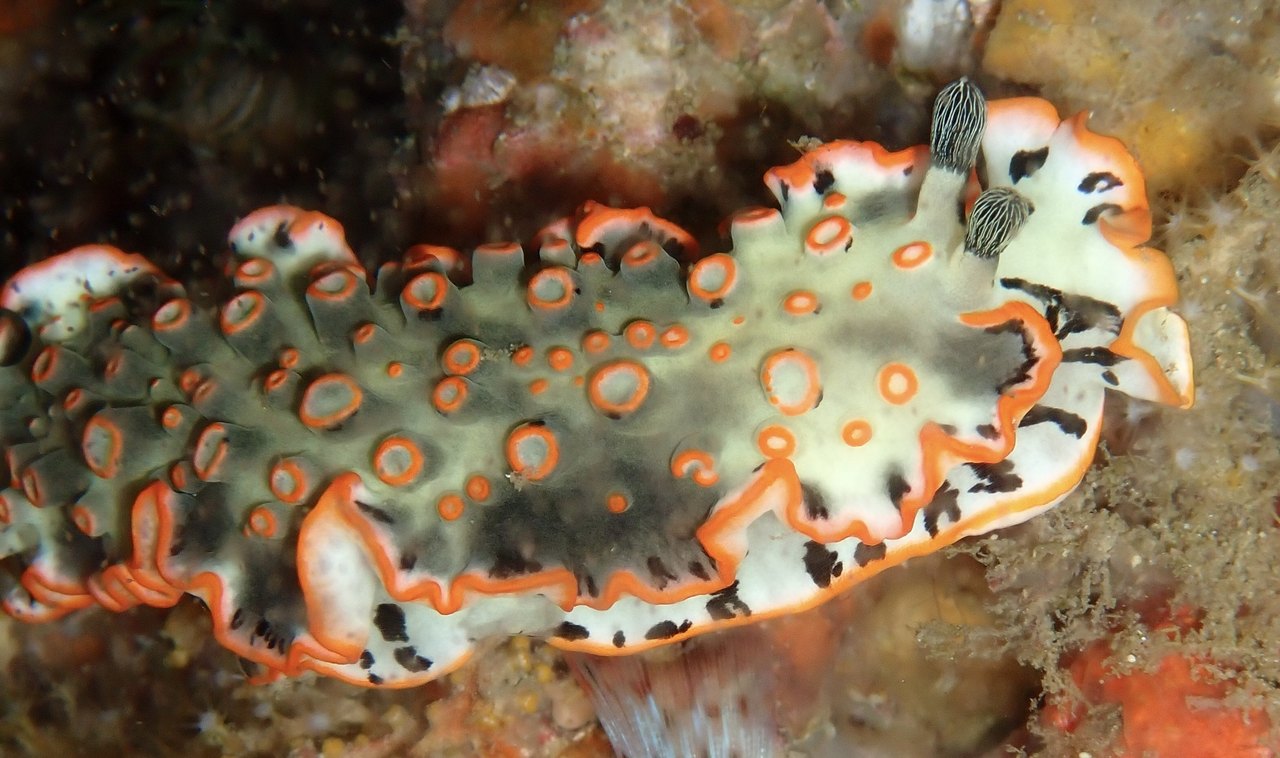
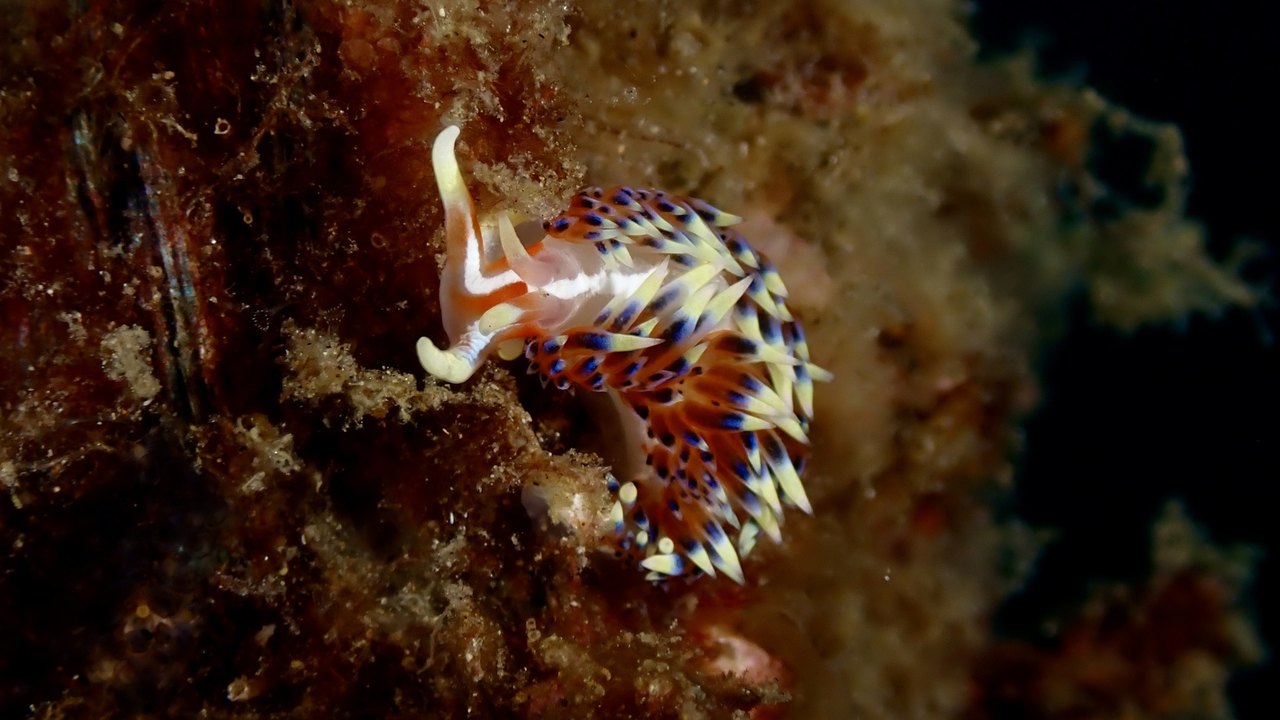
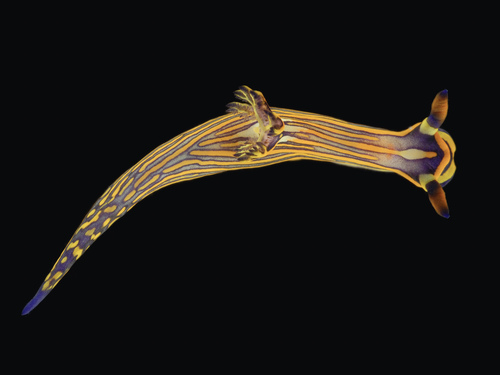
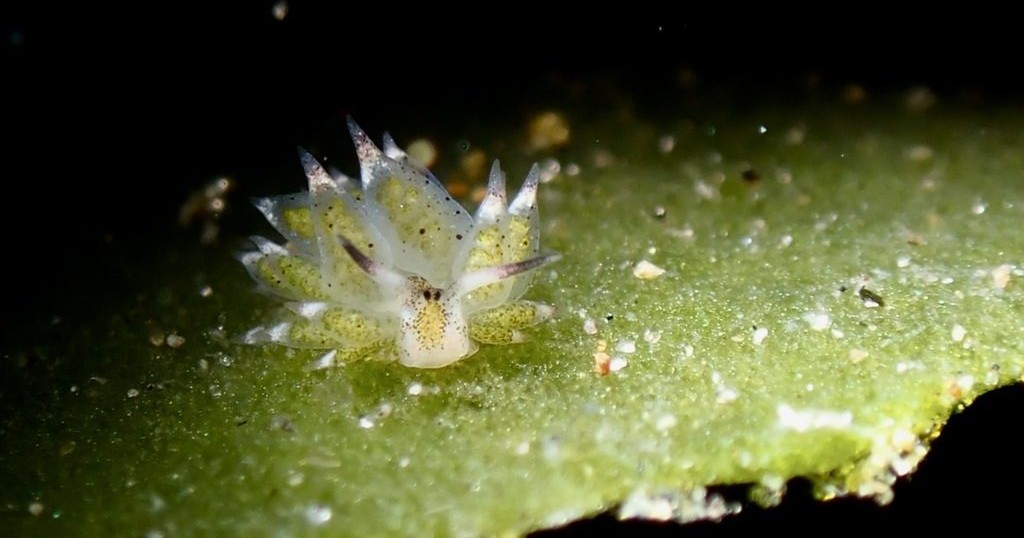
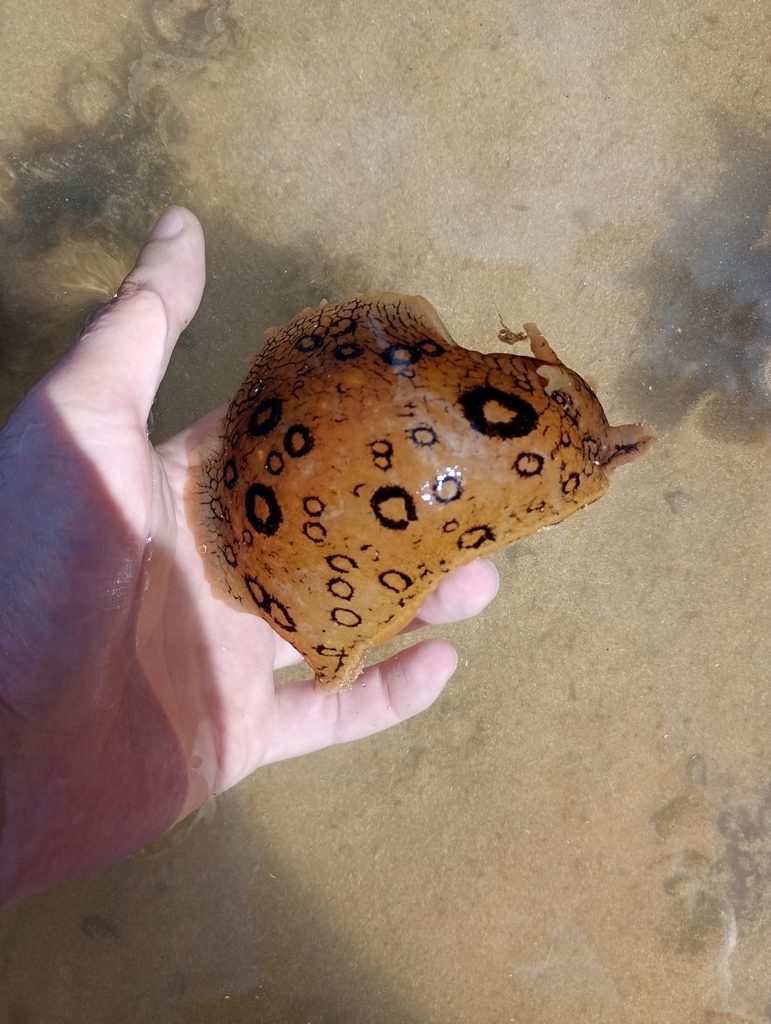
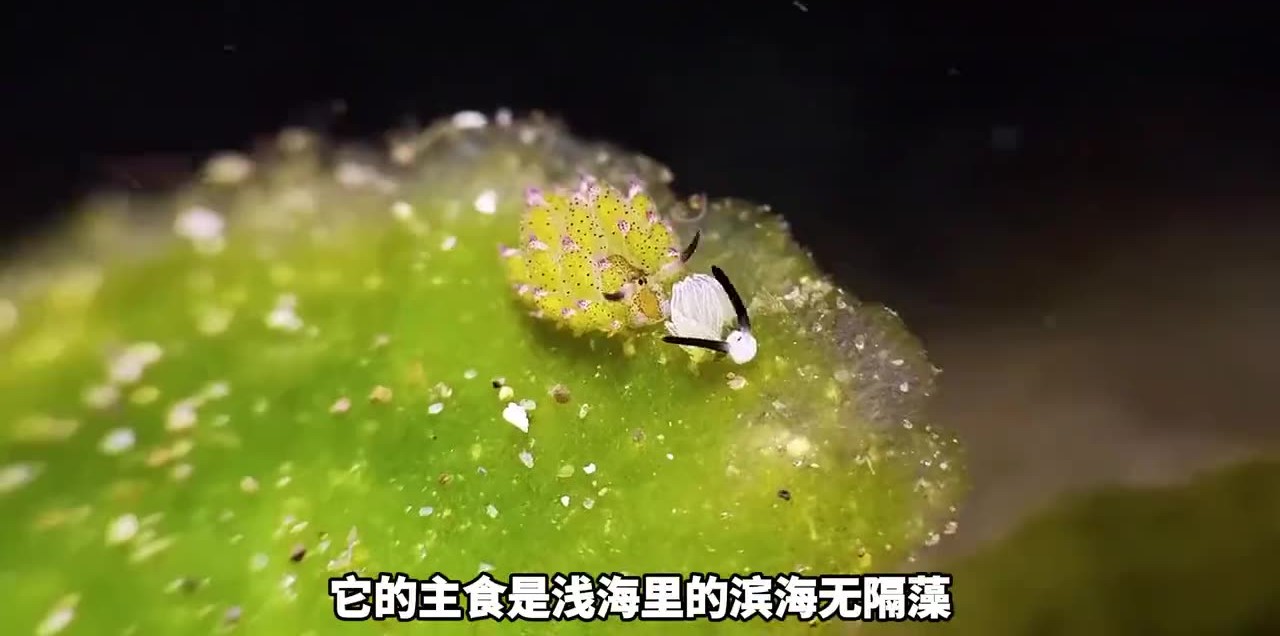
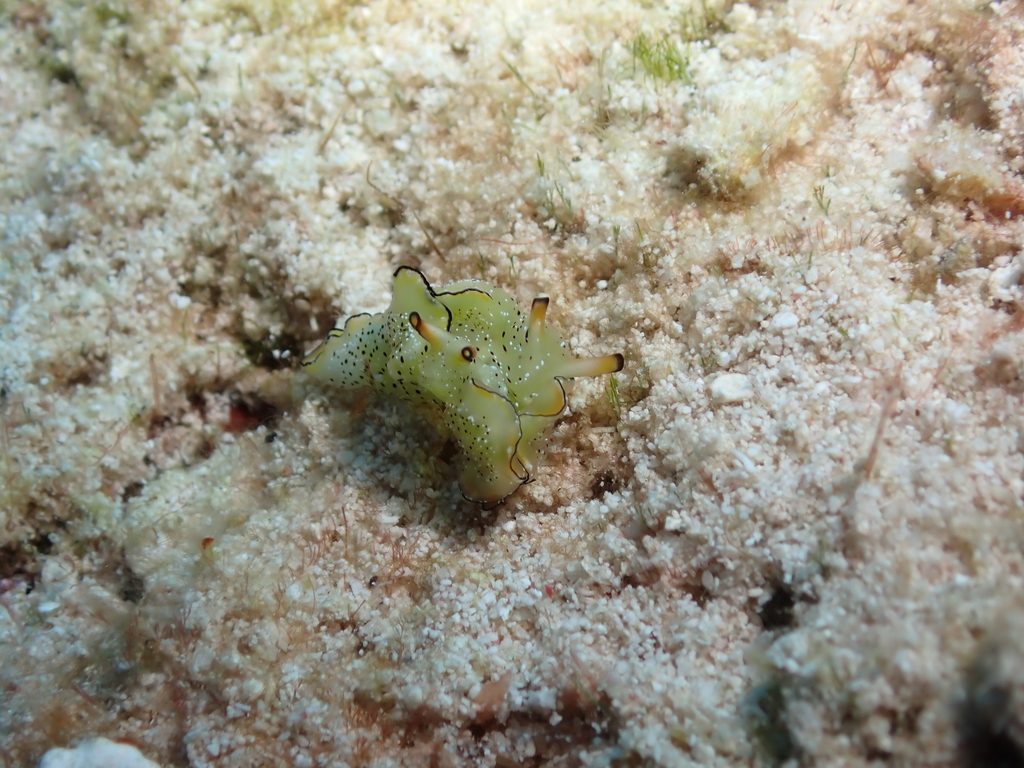
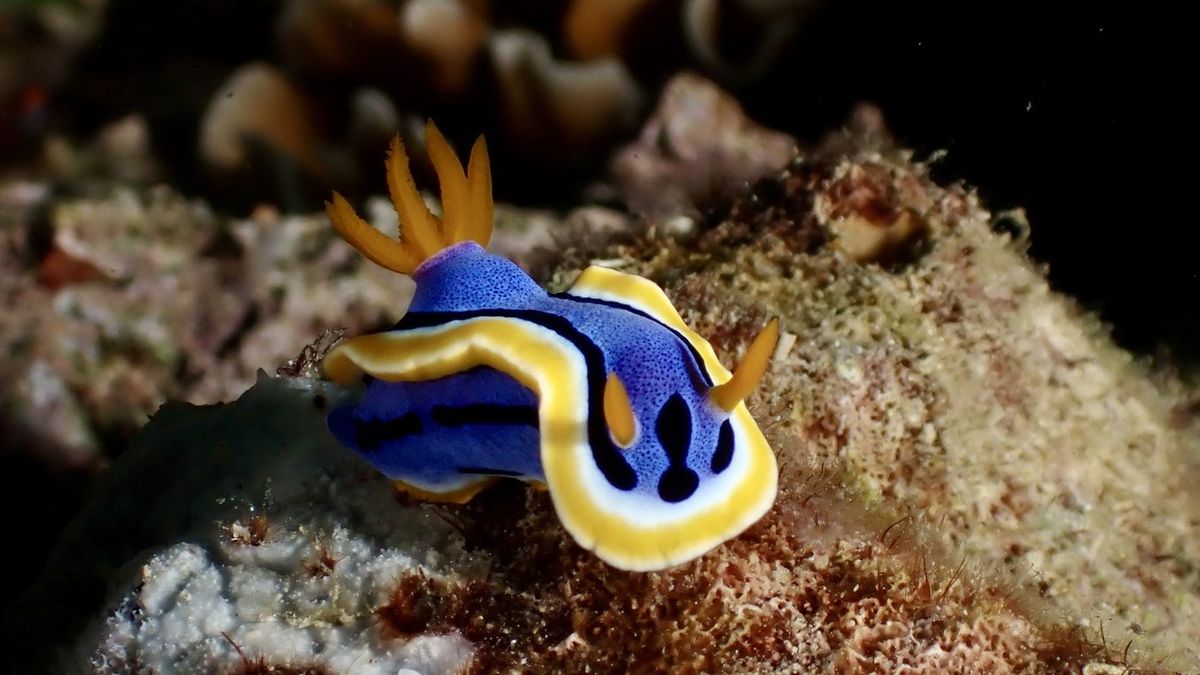
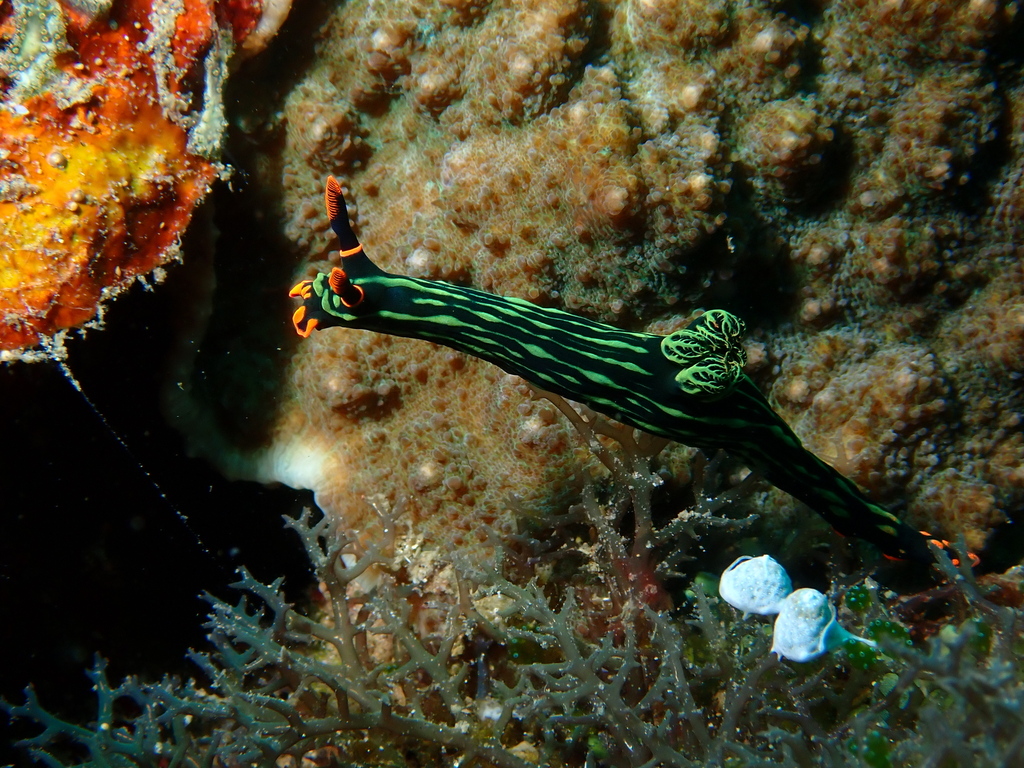
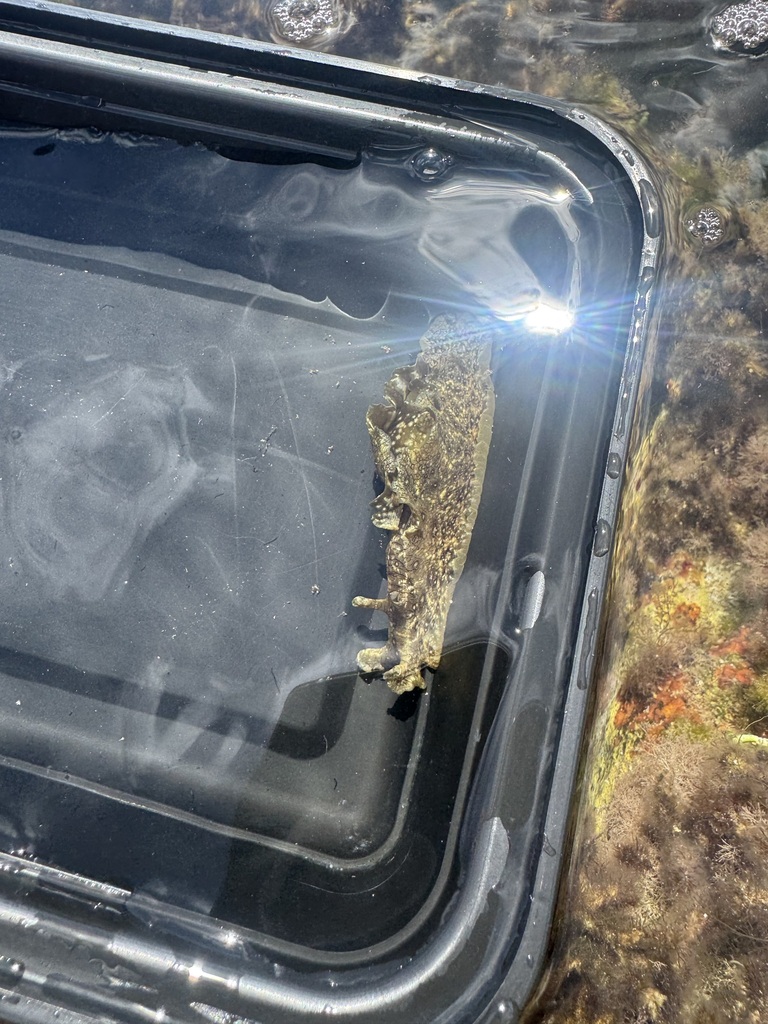
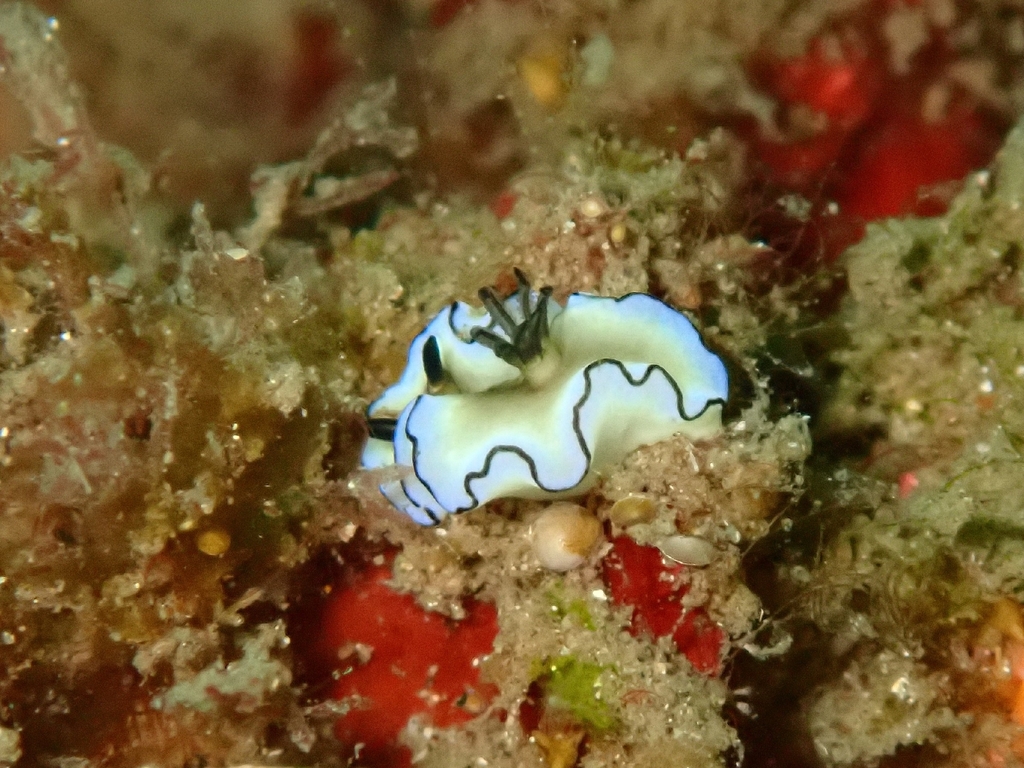
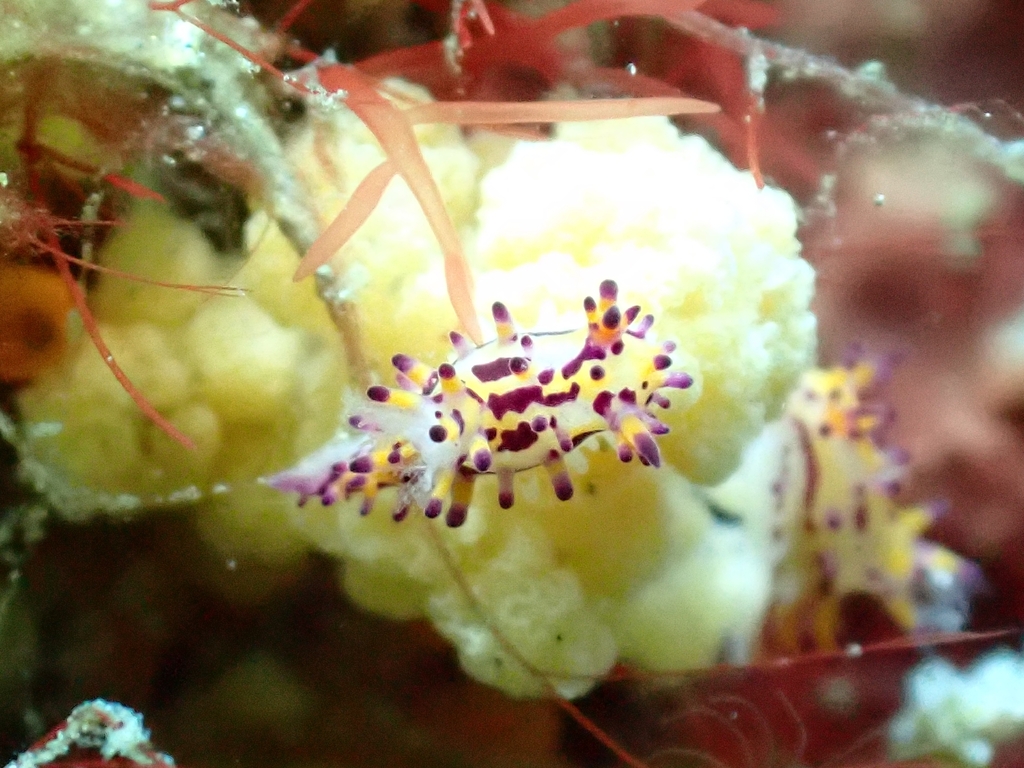
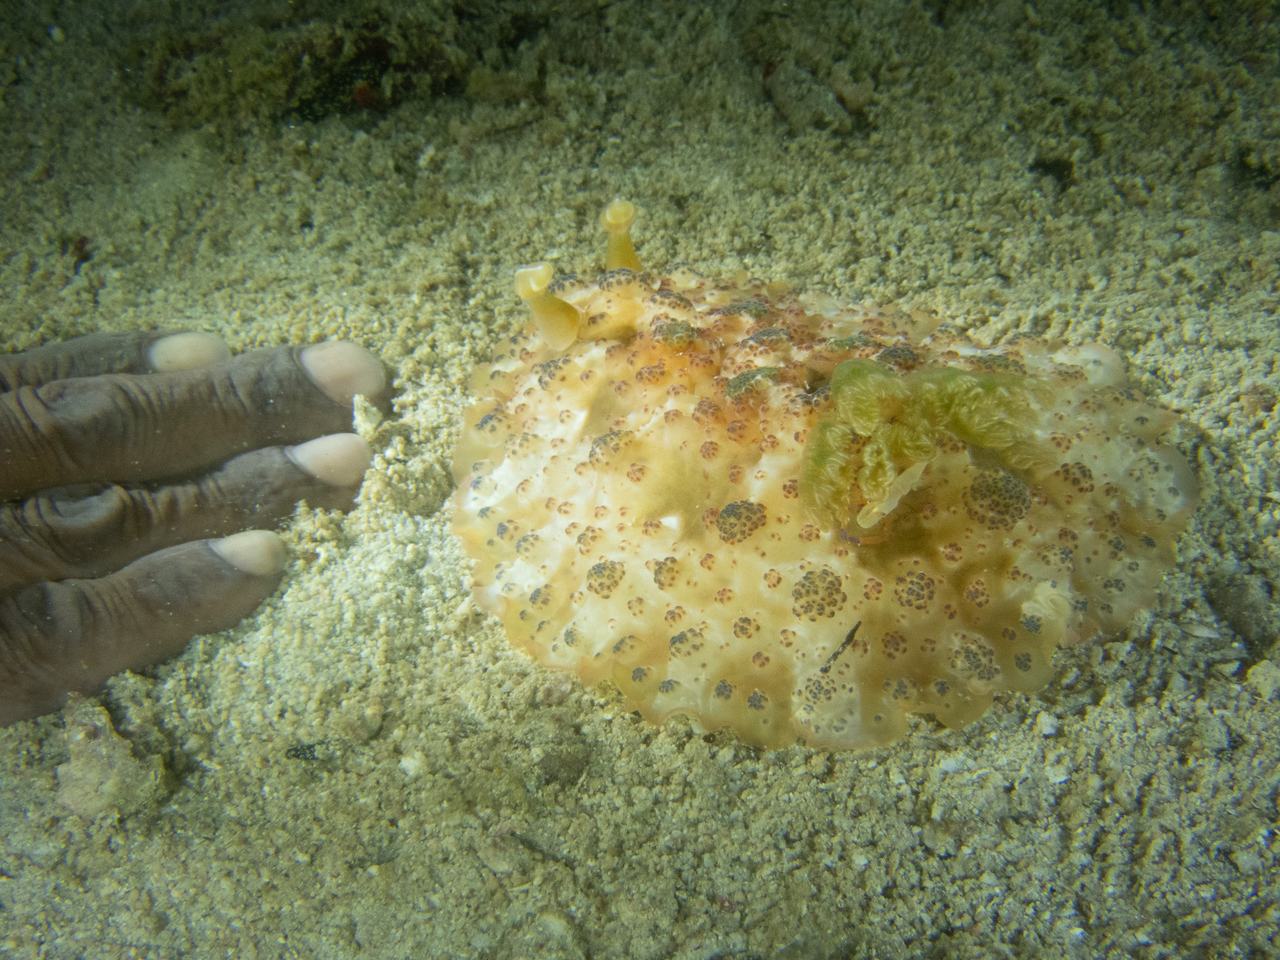
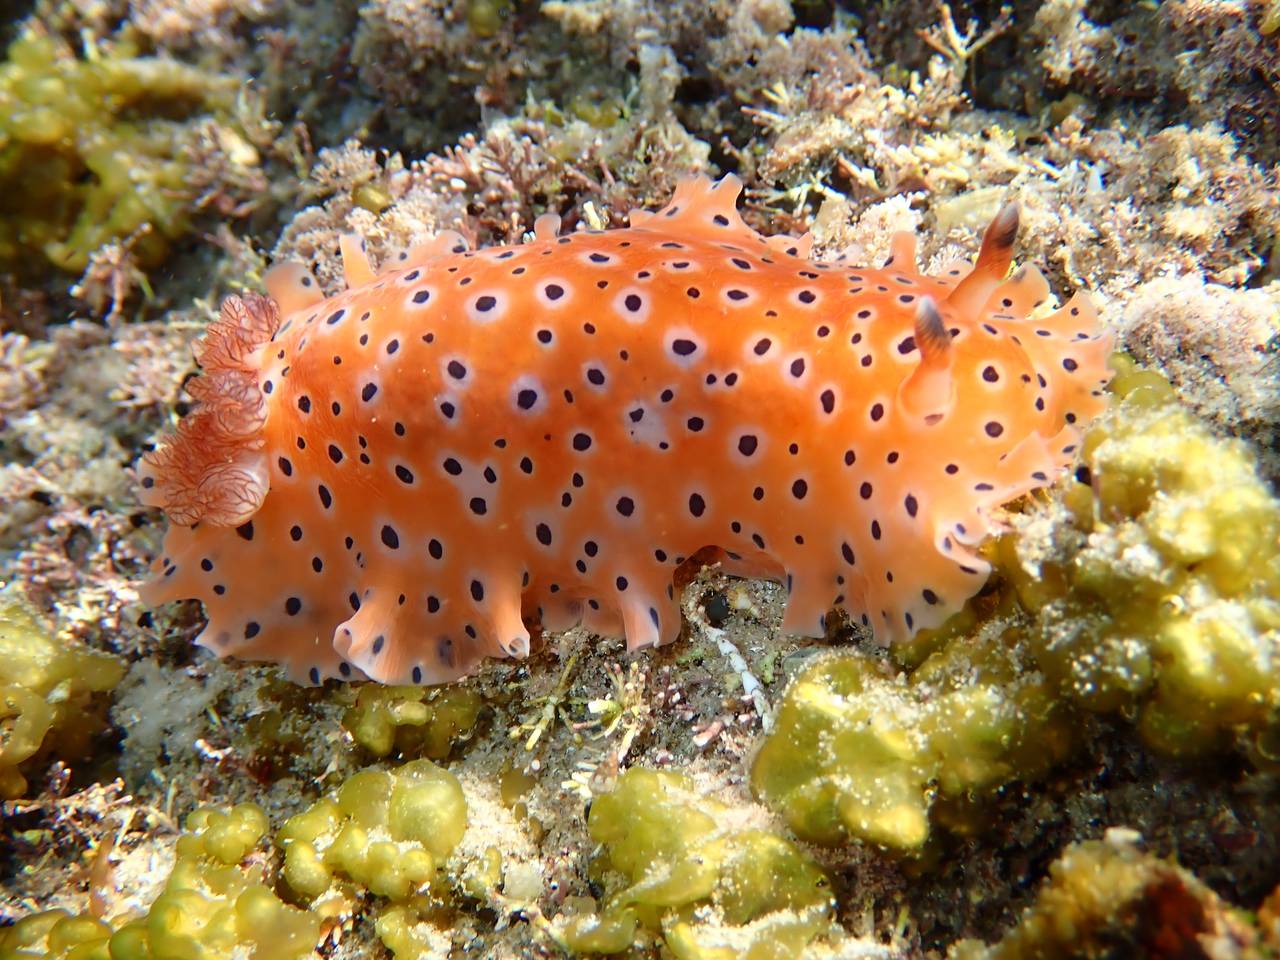
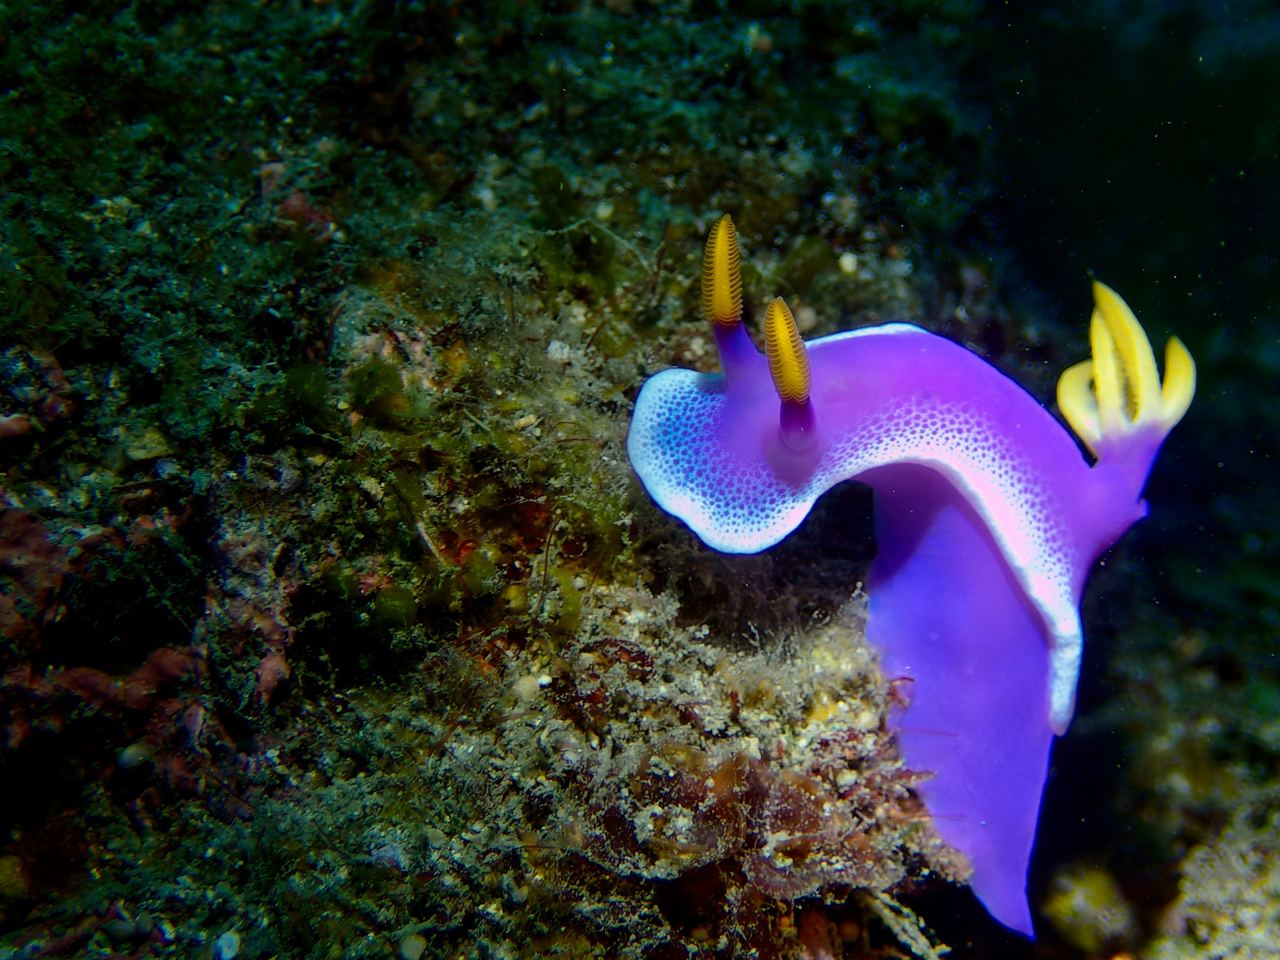
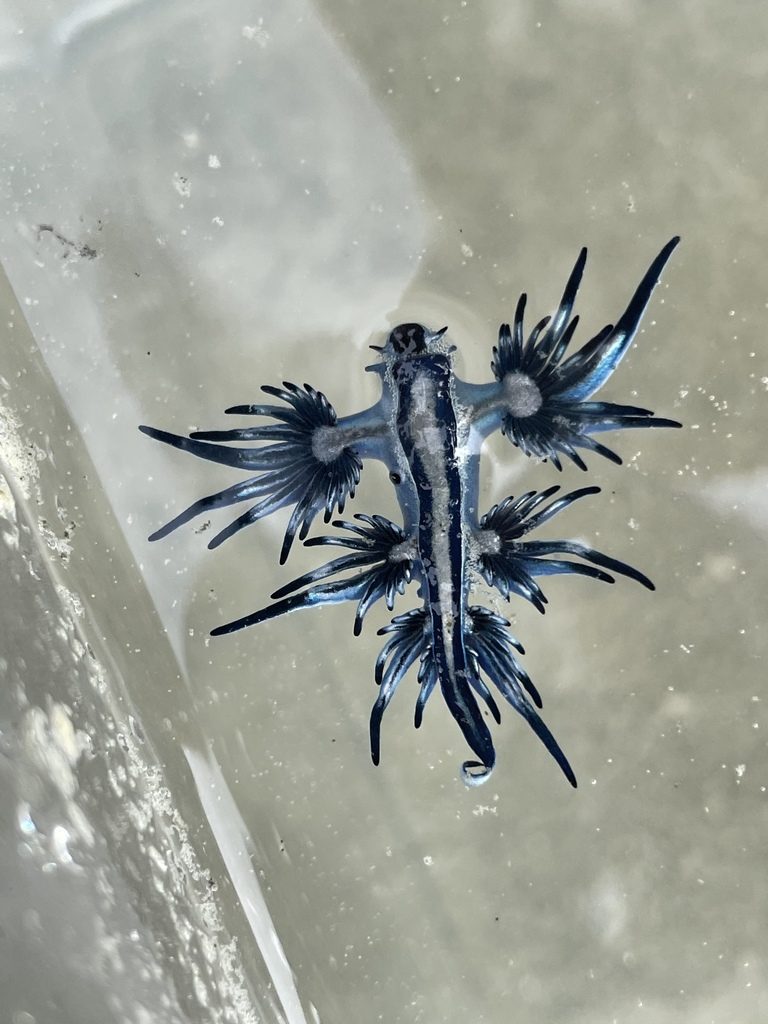
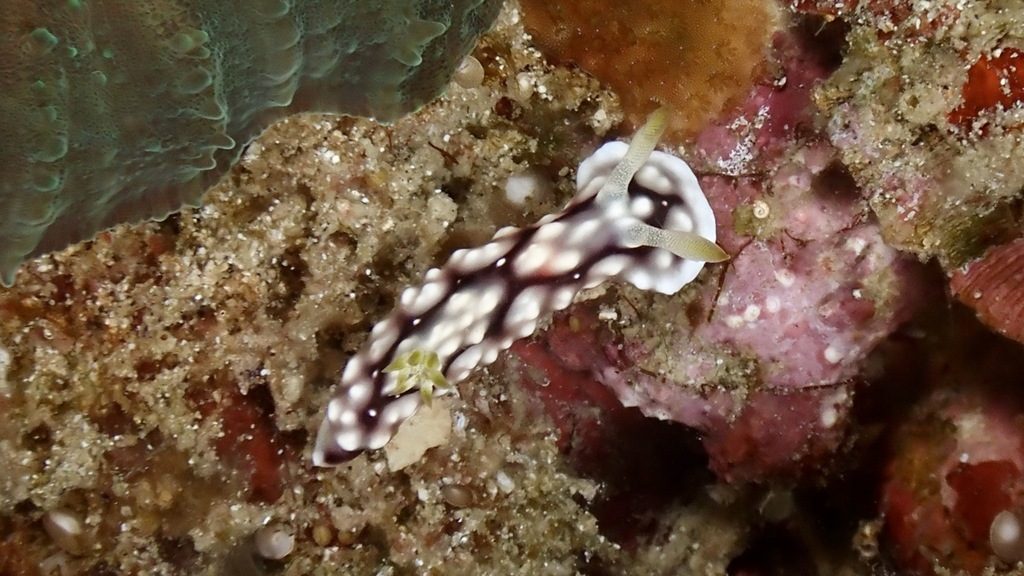
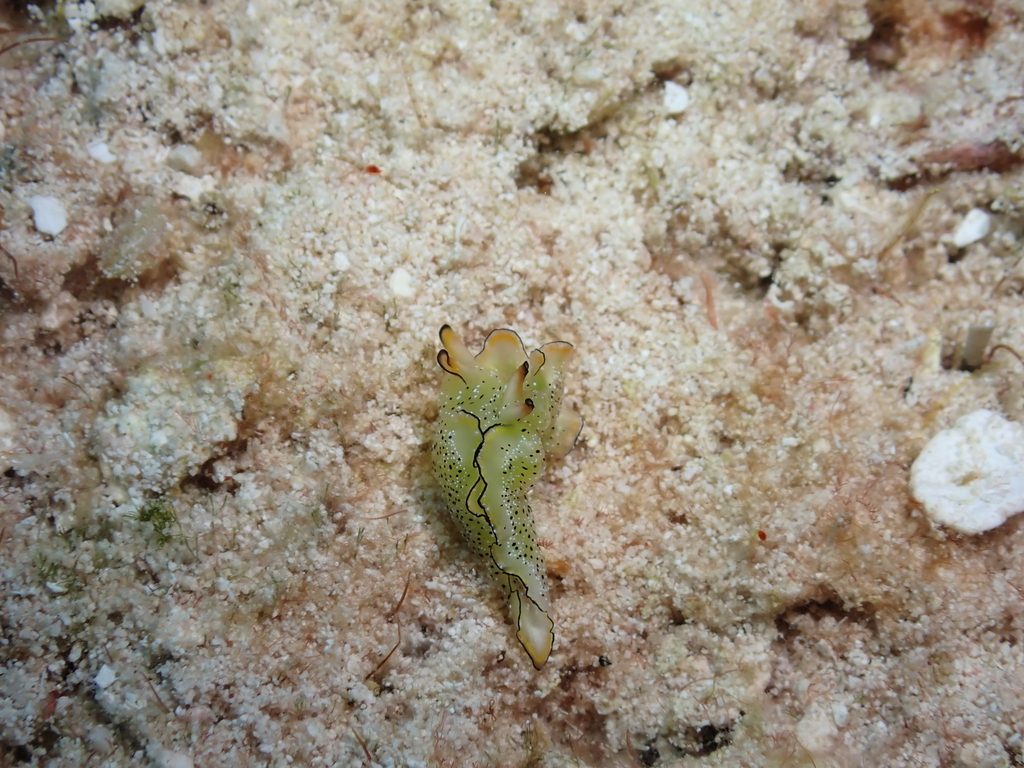
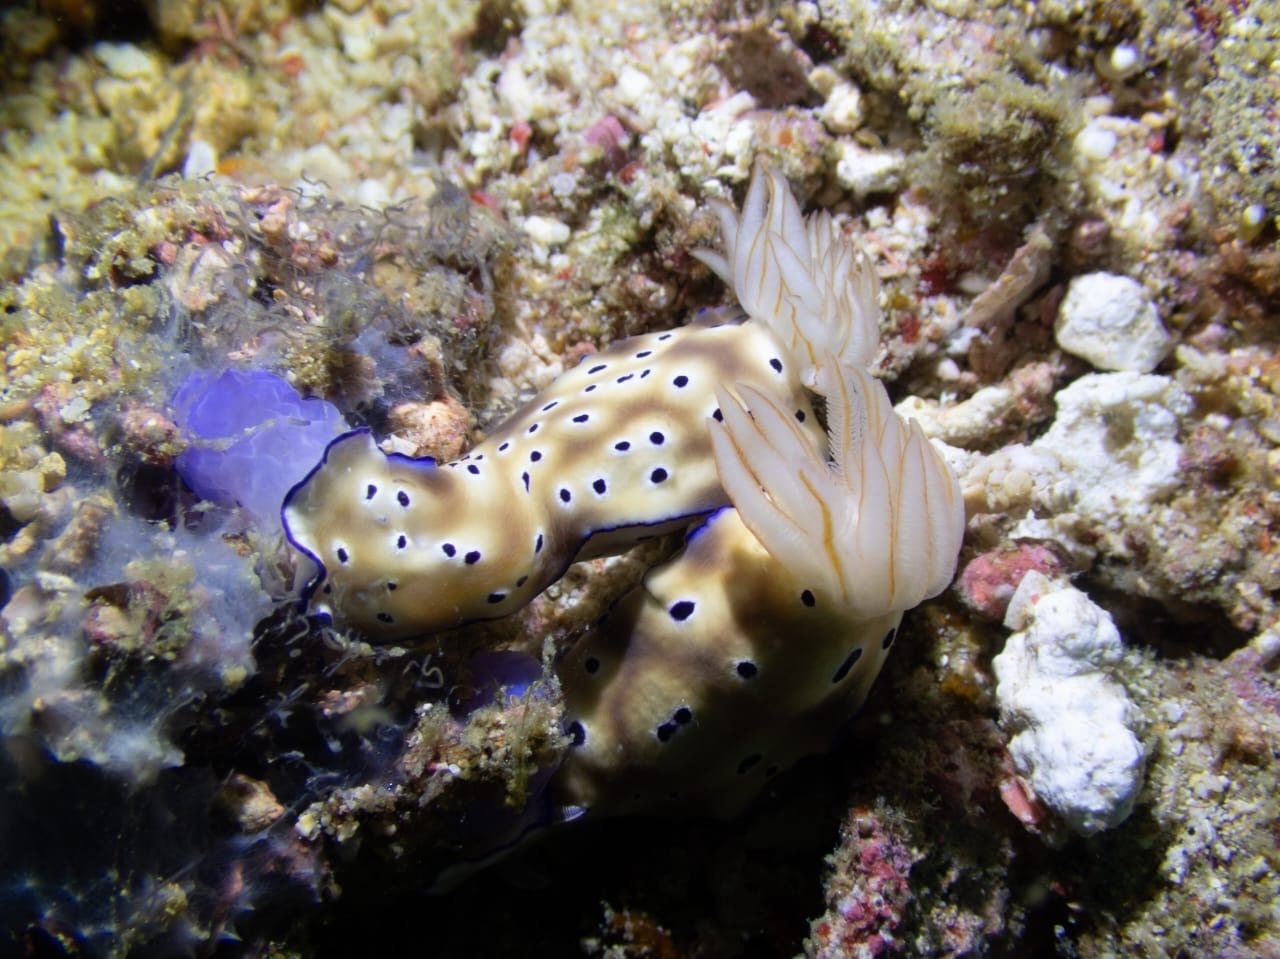
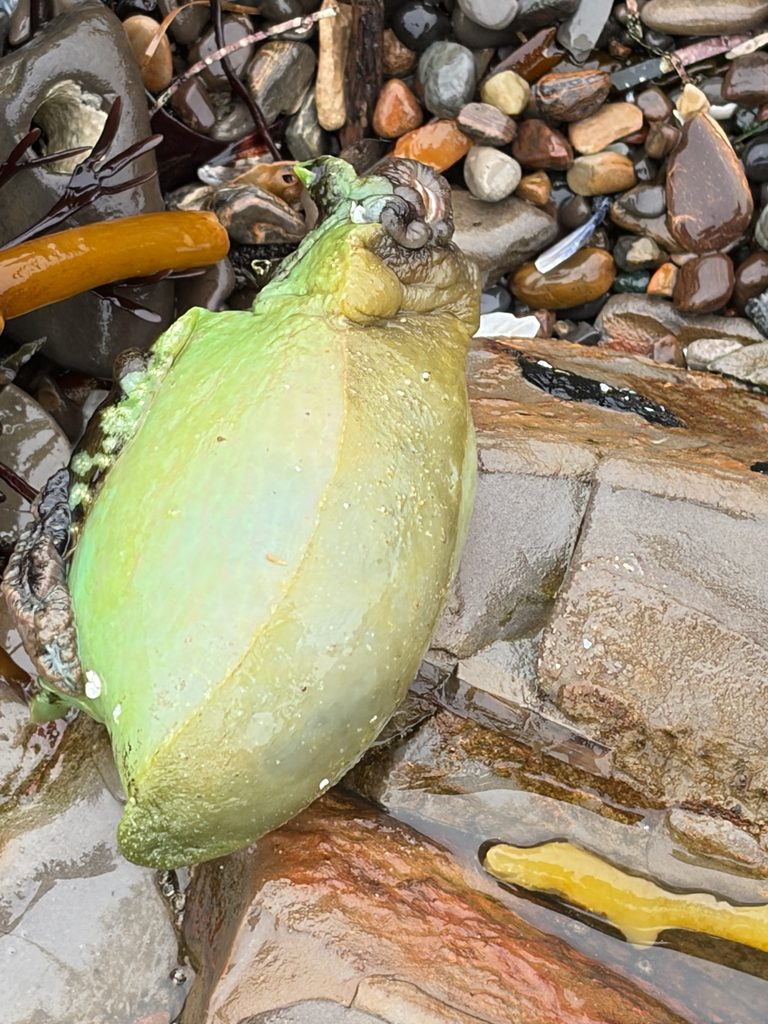
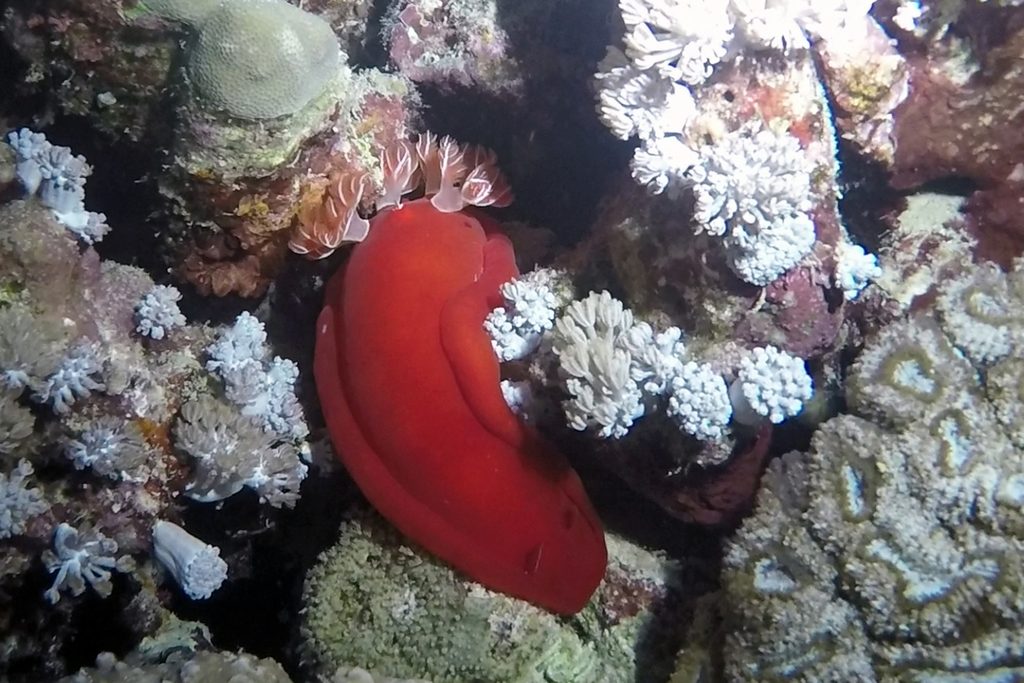
每一张照片背后都有一次下潜。潜水员、研究者与普通人,讲述他们如何在一片蓝色里撞见这抹颜色。
它们没有壳、没有大脑皮层,却把「活着」这件事做得格外漂亮。从身体结构到生存策略,一次讲清楚。

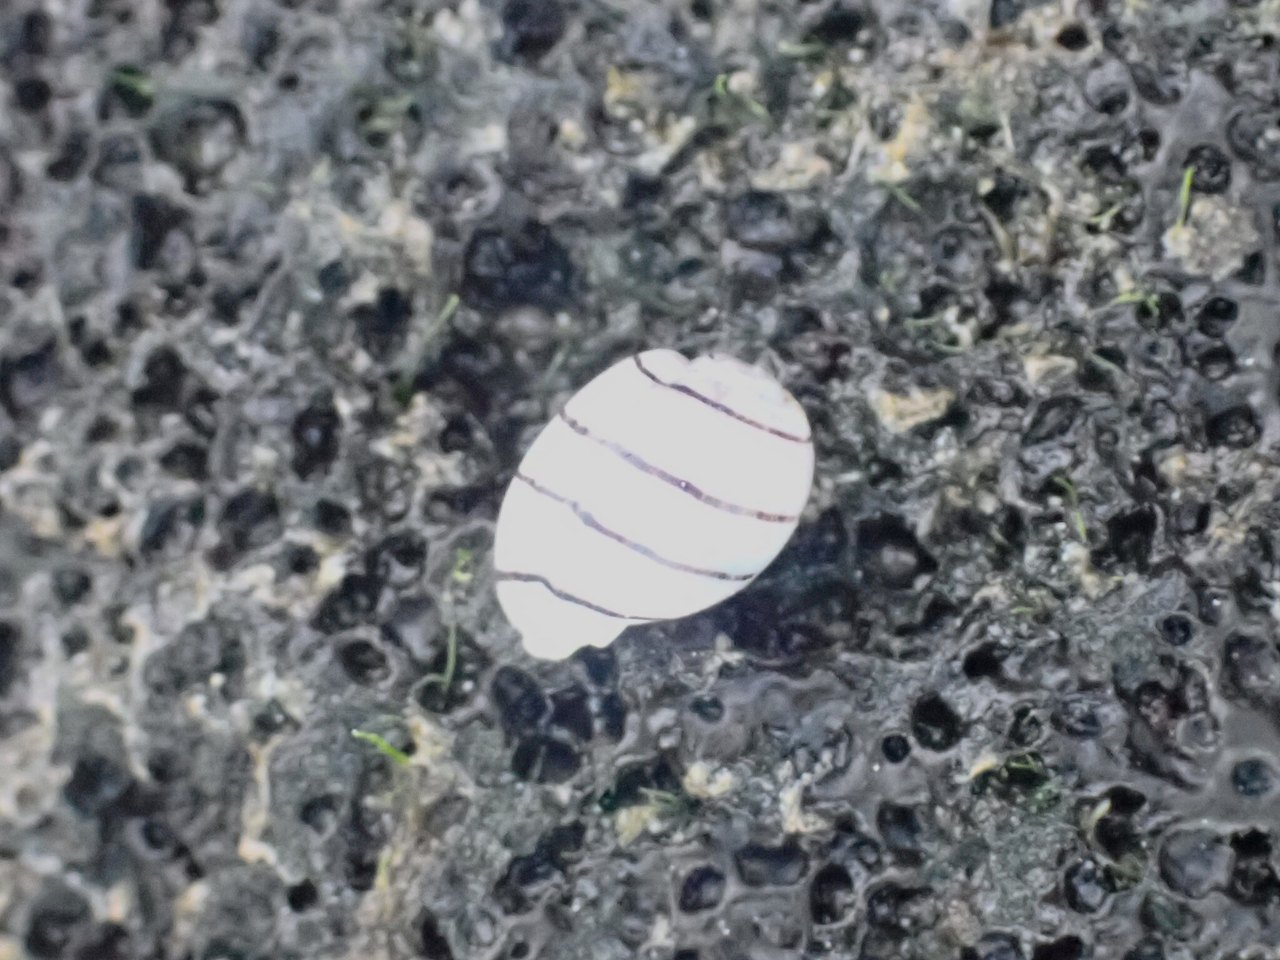
海蛞蝓属于腹足纲,其中裸鳃目的外壳在演化中完全退化掉了。丢掉壳意味着丢掉最主要的物理防护,但它们换来的是两样东西:一是体重和体积的大幅压缩,能钻进礁石缝隙里取食;二是把防御预算全部投进化学武器。省下的钙,变成了毒素和颜色。也有特殊的比如有壳海蛞蝓:线纹泡螺、泡螺、丽纹泡螺、波纹泡螺等。

它们啃食海绵、海鞘、水螅甚至同类,把对方体内的毒素原封不动地隔离、浓缩,储存在背部表皮或露鳃里,变成自己的防身手段。这套做法叫「盗用化学防御」——也意味着同一种海蛞蝓吃什么、就有多毒,毒性是吃出来的,不是长出来的。
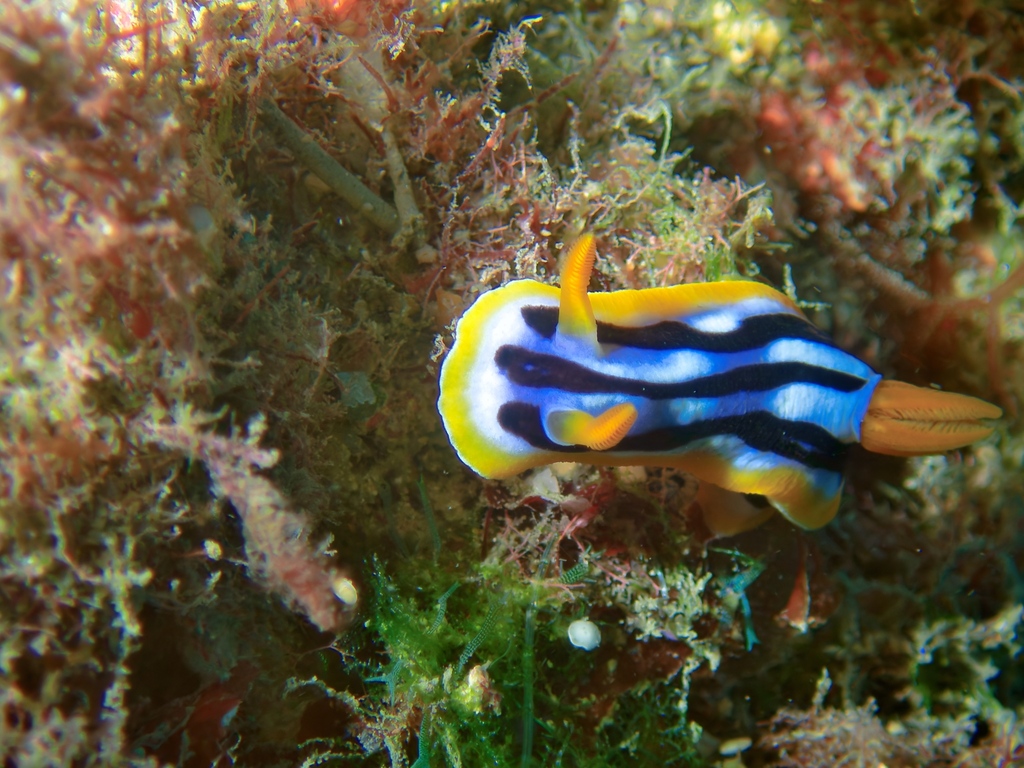
鲜艳往往是警戒色(aposematism):用醒目的配色告诉捕食者"我有毒或不好吃",越艳通常防御越强。

背上的那一簇是鳃,负责呼吸;头顶那两根棒状的是嗅角(rhinophore),负责闻味道。海蛞蝓的视力极弱,几乎只分得清明暗,找食物、找配偶主要靠嗅角捕捉海水里的化学信号。所以拍照时对焦落在嗅角上,通常是对的。

囊舌目的叶蛞蝓吸食藻类后,会把叶绿体完整地留在自己的消化腺细胞里继续光合作用,这叫「盗食质体」。绿叶海蛞蝓(Elysia chlorotica)能让叶绿体保持活性数月,几乎不用进食就能活下来——而它的寿命本来也只有一年左右。

所有海蛞蝓都是雌雄同体,同时拥有雌雄两套生殖器官。为避免自体受精,生殖孔长在身体右侧,交配时两只并排贴住对方右侧、互相交换精子,之后双方都能产卵。对行动缓慢、分布稀疏的底栖动物来说,遇到任何一个同类都能繁殖,是很划算的策略。

它们大多游得很慢,也没有硬壳护身,于是把「我不好吃」直接写进颜色里——这叫警戒色。有意思的是颜色本身往往来自食物:同一种海蛞蝓吃不同海绵,体色可能不同。反过来,一些无毒种类会拟态成有毒种类的样子,靠长得像骗过捕食者。
微距、稳浮力、用对角灯短暂定位后立刻关闭——别为构图搬动它,被挪过的个体可能数日难恢复。
大多数海蛞蝓是一年生的:春天孵化,夏天长大,秋天交配产卵,产完卵身体就迅速衰竭死亡。你在礁石上看到的那一只,很可能已经在世上活了大半年,剩下的时间只够完成繁殖这一件事。所以同一片礁区,不同月份去看,个体的大小分布完全不一样——刚补充进来的幼体小到几乎看不见,成体则集中在繁殖季前后。这也解释了海蛞蝓种群为什么年际波动那么大:今年条件好、食物足,明年就多;反过来可能一整片礁石上都难找。想认真记录它们,最好固定地点、固定月份,连着看几年。
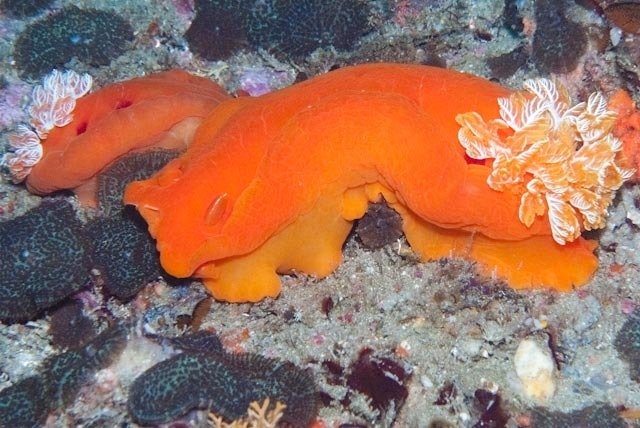
海兔是雌雄同体,但要异体受精,不能自己给自己授精。于是它们想出了一个省事的办法:排成一串。最前面那只只当雌性,最后面那只只当雄性,中间的每一只都同时对前面充当雄性、对后面充当雌性,一条链子上常常串着三五只,多的时候十来只。交配能持续好几个小时甚至几天。更妙的是,海兔的雄性器官是用过即丢的:交配结束后会把用过的部分丢弃,再重新长出一段新的,供下一次使用。下次在潮池里看到一长串海兔,别以为是排队吃饭。
海蛞蝓产的卵不是一颗一颗的,而是被胶质黏成一条细长的卵带,像挂面,也像粉丝——闽粤沿海说的海粉、海粉丝,就是某些海兔的卵群带晒干后的样子。数量上它不是几十颗的量级:有资料记录 18 米长的海兔卵索带里约含 10.8 万颗卵;蓝斑背肛海兔一次产卵可含约 35 万颗。产这么多,是因为能孵化出来的极少,绝大多数都被别的动物吃掉了。所以看到石头上缠着一坨粉丝一样的东西,那不是垃圾,是几十万个还没开始的生命。
很多海蛞蝓挑食到令人发指:一辈子只吃一两种东西。吃玻璃海葵的 Berghia 几乎只认 Aiptasia,缸里的玻璃海葵吃光了,它就会慢慢饿死,连送到嘴边的其他食物也不碰;吃海绵的种类往往只认某一属甚至某一种海绵,换一种就不吃。这背后是化学防御这门生意——它们要从特定猎物里提取特定的化合物存进身体当武器,食谱一旦换掉,武器就断了。所以海缸里的海蛞蝓养不活,第一位的死因往往不是水质,而是你根本不知道它吃什么。买之前先问清食谱,是最重要的一步。
裸鳃目这个名字很直白:鳃是裸的,直接长在身体外面,没有壳罩着,也没有腔室藏着。多数种类在身体后半部、肛门的周围长着一圈羽状的鳃,像一簇展开的小羽毛,水从周围流过就完成了气体交换;遇到惊扰,很多种类能把整簇鳃缩回体内。蓑海牛类另有办法——它们背上密密麻麻的指状突起本身就兼当鳃、胃和武器,突起顶端存着从猎物那里缴来的刺细胞。而叶海牛科更特别,它们的鳃藏在外套膜下面,从背面看只有一片光滑的背,这正好是辨认这一科的关键。
海蛞蝓的嘴不在脸上,而在头部腹面,也就是肚子底下那一侧。吃东西时它伸出一套叫齿舌的结构——一条像锉刀一样的带状器官,上面排着一排排细小的角质齿,靠它把海绵、水螅、藻类一层层刮下来送进嘴里。有的种类齿舌强壮到能啃穿水母的胶质。正因为口器朝下,看照片时你几乎看不到它的脸,能看到的是一对嗅角(化学感受器)和一对口触手,那两对真的像兔耳朵的东西,其实一个管闻、一个管摸,都不是眼睛。下次拍微距,把镜头压低一点从侧面拍,运气好能拍到齿舌刮食的那一秒。
海蛞蝓的鲜艳不是天生的颜料,很大程度上是食物留下的。吃海绵的种类会把海绵里的化合物富集在自己身上,颜色随食谱变化;吃藻类的海兔也是吃什么像什么——吃红藻的个体偏红,吃墨角藻的偏棕绿。更有意思的是,这些从食物里搬来的化合物往往同时是武器:颜色越扎眼,越是在对捕食者说我不好惹。甚至连长得完全不像海蛞蝓的动物也来蹭这个警告色:有一种海参的幼体,颜色和花纹模仿得和叶海牛几乎一样,借它的名声保护自己。所以它的颜色,既写在食谱里,也写在生存策略里。
不小心捏破一只海蛞蝓,流出来的不是红色的血,而是几乎无色透明的液体。原因很简单:脊椎动物靠血红蛋白运氧,铁离子让血液呈红色;而海蛞蝓这类软体动物大多用血蓝蛋白(含铜)或直接靠体腔液输送,含铜的呼吸色素要到氧合状态才呈淡蓝色,未氧合时近乎无色,加上它们没有密集的血管网络,体液看上去就跟清水一样。这也解释了它们为什么那么软——支撑身体主要靠水压和肌肉,一旦体表破损,体液很快流失,个体就很难恢复。所以,看海蛞蝓最好的方式是只看不碰。
海蛞蝓几乎不把卵一颗颗产下,而是用胶质把卵黏成一条细长的卵带,再盘成螺旋、波浪或花朵状贴在礁石、海藻或海绵上。螺旋的形状不是随便长的:它让很多卵在很小的面积里紧紧挤在一起,既减少被水流冲散,又让卵带更容易粘牢在基质上。对很多一年生的海蛞蝓来说,这一团卵就是它留给下一批种群的全部希望,而螺旋结构恰好兼顾了容量、稳定和附着三大需求。
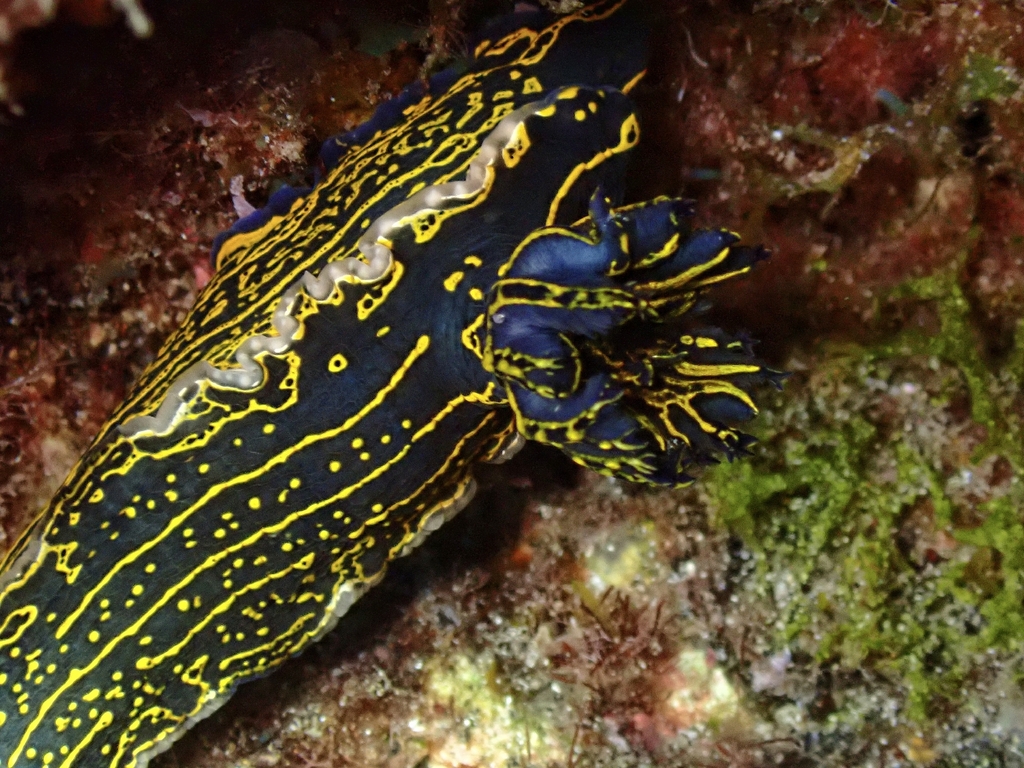
海蛞蝓没有壳护身,却有一套相当硬核的防御。很多种类会富集猎物(海绵、水螅、藻类)里的化合物,存进体内当化学武器,有的还能分泌含硫酸的黏液驱避捕食者;更绝的是蓑海牛类会把水母、水螅的刺细胞搬到自己露鳃顶端,借别人的刺防身。配合这套化学防御的,往往是高对比的警告色——红黄黑配色明明白白地告诉捕食者:我不好惹。鲜艳,在这里是保命信号。
海蛞蝓头上那对像小棍或小叶片一样的结构叫嗅角,是它主要的化学感受器,相当于能伸能缩的鼻子,用来在水中探测食物、同伴和天敌散发的化学信号。嗅角能像天线一样竖起收集信息,受惊时又能缩回体内藏起来。它和头部另一对负责触觉的口触手是两回事:口触手管摸、管找路,嗅角管闻、管定向。所以你看到海蛞蝓不断摆动头部,其实是在用嗅角分辨面前这一片水里的气味地图。
很多海蛞蝓的卵孵化后先变成浮游的面盘幼体(veliger),身上带着用来游泳和进食的纤毛盘,随洋流漂上一段时间,靠吃海水里的微小浮游生物长大。等到体型够了、遇到合适的底质和食物,幼体就沉降下来,经历变态,脱掉浮游阶段的结构,长出成虫的嗅角、鳃和腹足,变成我们熟悉的那个趴在礁石上的样子。正因为有这段浮游期,海蛞蝓才能跨越不短的距离去开拓新的礁区。
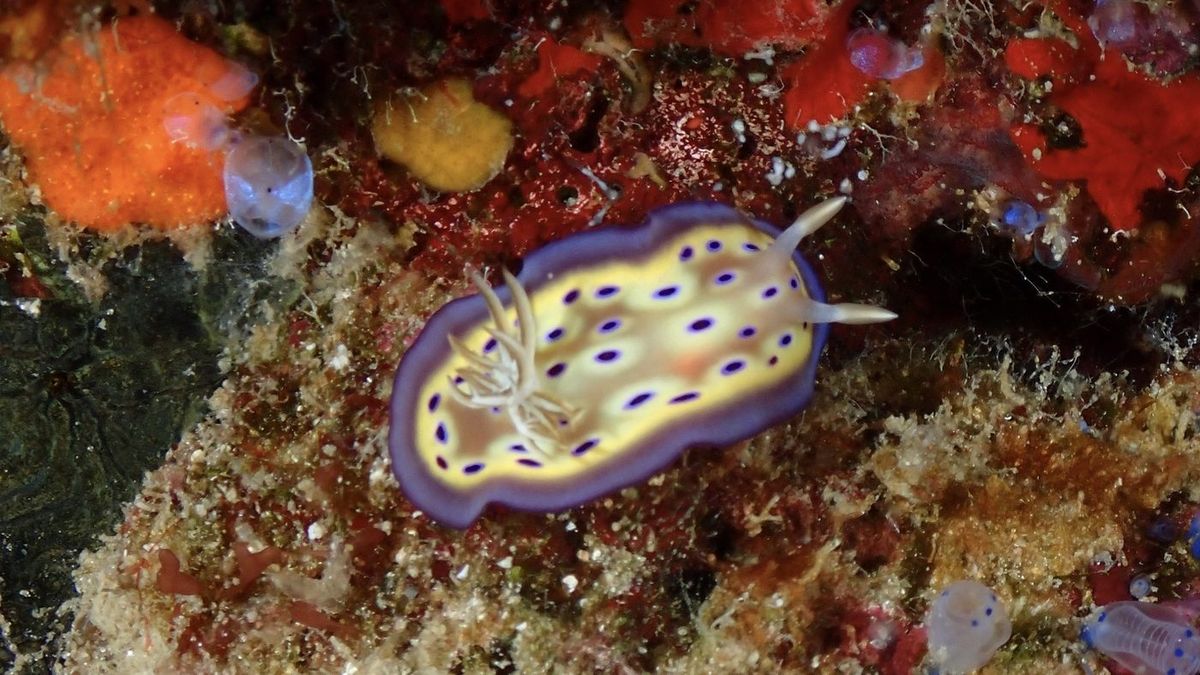
许多海蛞蝓的鳃没有藏在体腔里,而是以羽状结构环绕在背部后端,裸露在外,随水流轻轻摆动来交换气体。这也是它们名字里「裸鳃」二字的由来。正因鳃部暴露,它们对水质变化相当敏感,也让潜水者多了一个辨认特征:看到背上那丛羽毛状的小树,多半就是一只裸鳃类。有些种类受惊时还会把鳃短暂收回。
海蛞蝓身上明亮的橙点、紫边和网纹,在人类眼里是美,在海洋里却往往是警告色:告诉捕食者「我不好吃」。不少裸鳃类以海绵、水螅等为食,能把食物中的毒素或刺细胞储存起来转为己用,颜色越扎眼,往往意味着防御越强。这套「广告牌策略」在珊瑚礁的小型生物中非常常见,是弱者的生存智慧。
海蛞蝓头上那两根经常被当成耳朵或触角的东西,正式的名字叫嗅角。它不是用来碰东西的,而是用来闻的:里面布满化学感受细胞,能分辨水里的气味分子。水流从它面前经过,它就知道附近有没有食物,有没有同类,有没有危险。裸鳃类的嗅角表面往往起皱、呈叶状或分层排列,这些结构的目的只有一个——在有限的空间里塞进更多的感受面。把镜头凑近拍一张,能看清那些褶皱,那不是花纹,是它把表面积撑到了最大。有的种类受惊时会把嗅角整根缩回鞘里,只留下两个圆孔,等水流平静了再慢慢伸出来。所以观察海蛞蝓的时候,如果它头上只剩两个小洞,别急着去找别的特征,它只是把鼻子收起来了。
海蛞蝓也有牙,但不在嘴里,而是长在一条带上。这条带叫齿舌,像一条传送带,上面一排一排排着细小的齿。吃东西的时候带子前后移动,前面的齿刮下食物,后面的新齿补上来。齿的形状和它的口味直接对应:吃海绵的,齿往往宽而带钩,能把海绵的骨针和软组织一起刮下来;吃水螅的,齿常常一侧带着许多小尖,像一把小梳子;吃海藻的,齿则更接近锉刀的形状。所以做分类的人常常要把齿舌取出来,放在显微镜下看,才能确定一只海蛞蝓到底是谁。一只不到两厘米的动物,光为了吃,就长出一整套形状不同的工具,这件事在显微镜下面看会格外清楚。
有一类海蛞蝓叫囊舌类,它们吃绿藻。吃东西本身不稀奇,稀奇的是接下来发生的事:藻细胞里的叶绿体被它留下来,不消化,而是收进自己体内的一些细胞里。这些叶绿体进去以后还能继续工作,有光的时候照常把光变成养分,供给宿主使用。也就是说,一只动物靠借来的叶绿体吃光过日子。这个现象专门有个名字,叫盗食质体。它并不是真正意义上的光合自养:叶绿体是借的,用几周到几个月就会老化,得靠不断吃新的藻来补。所以到头来,这项本领的底色仍然是最老实的一件事——得吃饭,得吃藻,得一直吃。
很多人下水一次没看到海蛞蝓,就认定那条线没有。事实上多数海蛞蝓只有一到五厘米,行动缓慢,而且非常像它所在的地方:有的和沙同色,有的扁平得像一片叶子,有的混在珊瑚藻里分不出来。想找它们,通常要做几件事。第一是慢下来,停止游动,等扬起的沙落回去,让视线贴着底走。第二是别只看形状,找异常:一块太平滑、太规整、颜色太干净的东西。第三是翻面,看叶状藻的叶面,看石头的侧面和背面。第四是换时间,不少种类在夜里才出来活动。还有一点常被忽略——见过一次之后,第二次就容易得多,因为你的眼睛终于记住了它们的样子。
有些海蛞蝓背上覆着一层细密的东西,远远看像绒毛,常被叫作海兔的那一类尤其明显。这些突起有自己的名字,叫海绵状小突起,不要和鳃搞混:鳃集中在身体某一段,用于呼吸;而这些小突起均匀散布在整个背上,大小接近,顶端往往还带着一个黑点或褐点,放大以后看是海绵一样的结构。一般认为它们与感觉有关,可能帮助动物感知自己趴着的表面是什么质地、附近有什么化学信号,但具体机制至今没有完全弄清楚。这一层东西让它们看起来暖、看起来毛茸茸,这也是它们在照片里格外受欢迎的原因。不过对动物自己来说,这不是装饰,而是长在背上的触觉。
海蛞蝓的学名一般由两个词组成:前面是属名,首字母大写;后面是种加词,全部小写;排印的时候整体用斜体,手写时在下方画线。属名表示它和谁最亲近,种加词往往是描述,比如 magnifica 的意思是华丽的,leopardus 的意思像豹子的,parva 的意思是小型的。看明白这一点,同一页上那些长串字母就不再只是标签:后面那个词通常会告诉你它长什么样、来自哪里,或者被谁第一个描述过。学名也会变。当研究认为一个种应该挪到别的属,属名会被改掉,种加词常常保留,于是物种名录上就会出现同一个东西挂着两个名字的情况。所以查资料时看到旧名和新名并存,不必当成错误,那是分类学还在工作的痕迹。
把一只海蛞蝓吓一跳,最常见的反应不是逃跑,而是消失。它的第一步几乎总是收缩:裸鳃类的鳃会缩回背上的鳃腔,嗅角缩回鞘里,身体两侧的侧足和突起收拢,整只动物比原来小一圈,也不再是照片上那个好看的形状。这一步之后,各家的办法就不一样了。有的贴在石面上不动,靠颜色过关;有的从体表分泌黏而难吃的物质;海兔这类还能放出紫红色的液体,把周围的水搅成一片雾,趁乱离开;也有能短暂游起来的,把侧足像翅膀一样扇动。极少数会主动脱掉身体的一部分,把被咬住的那一块留在原地。所以拿到一张缩成一团的照片不算拍砸,那正是它本来的应变方式。
海蛞蝓是雌雄同体,两只交配之后都能产卵。产卵时,足部前缘分泌黏液,把卵一颗颗包进一条透明的丝带里,再盘成一朵玫瑰、一个线圈或一卷麻花,固定在礁石或藻叶上。一条卵带里往往藏着上千枚卵,卵的大小和数量因种类而异:卵大的数量少,卵小的数量多。几天到几周后,多数种类的幼体破带而出,进入浮游阶段,随水流漂一段时间才沉底变态,慢慢长出海蛞蝓的模样。所以你在礁石上看到的「小海蛞蝓」,未必是谁家的孩子在慢慢长大,很可能是新一批孩子陆续落地。
很多观赏鱼能活十几年,海蛞蝓的生命却短得出奇。常见的裸鳃类大多一年上下:孵出的幼体先随水流漂浮,沉底变态,再慢慢生长,当年或次年达到性成熟,产完卵,生命往往就走到了尽头。热带种类有的几个月便完成一生,温带种类稍长,少数能活过一年半。这解释了两件事:一是海蛞蝓长得快,几个月内体型可以翻好几倍;二是种群数量波动大,今年满礁的年份,明年可能寥寥无几。对观察者来说,这也意味着每一次遇见都是限定的——眼前这只,可能只剩几个月的时间。
水螅、水母这类刺胞动物,靠刺细胞发射毒针捕食,而海蛞蝓里的蓑海牛一类偏偏专吃它们。更妙的是,这些海蛞蝓消化猎物时,会把还没发射的刺细胞原样打包,经由消化道的分支一路输送到露鳃末端的储刺囊里存着。一旦有鱼来咬,它就收缩露鳃,把攒下来的刺细胞当暗器打出去——武器是别人的,用起来却很顺手。所以看到背上一簇簇露鳃末端带着亮色小点的蓑海牛,那往往不只是装饰,而是它从上一顿饭里缴获的弹药;吃进去的食料不同,这些小点的颜色也会跟着变。
海蛞蝓靠腹足一波一波的肌肉收缩向前滑行,多数种类一分钟只挪出几个身位,速度以厘米计。它一路爬,一路分泌黏液,身后便留下一条微微反光的细痕。这条痕迹远不只是脚印:同类会循着对方的黏液迹找上门来,交配季尤其明显;有些捕食者也学会了沿着痕迹逆流而上,蹲守路线另一头的美餐。所以观察海蛞蝓有个笨办法:别只盯着一处礁石看,把视线放低,扫过整个表面,找那条细而亮的线——找到线,顺着走,线的尽头常常就趴着一只。慢,是它的生活方式;跟着慢走,是观察者的功课。
海蛞蝓确实有一颗心脏,而且结构和大多数腹足类软体动物一样,是一个由心房和心室组成的小型泵。多数海蛞蝓的心脏有一个心房和一个心室,血液先进入心房,再泵入心室,随后输送到全身。它们的循环系统是开放式的,血液并不始终待在血管里,而是会流到组织间隙再缓缓回收。虽然心脏很小,却要支撑起包括外套腔、消化腺和羽状鳃在内的全部代谢需求。正因为鳃直接露在体外、随时进行气体交换,这套简单却高效的心循环对它们的生存至关重要。
海蛞蝓常被归入裸鳃类,名字里的裸指的是它们的鳃没有外壳保护、直接裸露在身体表面。绝大多数海蛞蝓在演化中失去了蜗牛那样的外壳,原本藏在壳里的呼吸器官鳃,也就只能长在身体外侧,通常是一簇羽状或树枝状的突起,集中在背部后方,称为裸鳃或二次鳃。这些外露的鳃不仅负责呼吸,鲜艳的颜色还常常起到警示天敌的作用。可以说,裸鳃这个名称一语道破了它们最标志性的外形特征:没有壳、鳃在外。
主要靠嗅角的化学感受。海水中溶解的氨基酸与代谢物浓度梯度,足够让它们在数米范围内定位食物和同类。
白天出没会被鱼类捕食,夜间风险低。同时它们的猎物本身没有昼夜节律,夜间取食并不吃亏。
会,而且很快。多数物种的食谱极窄,宿主海绵一旦因升温或酸化消失,它们几乎没有替代食物。
可以。把原始照片、拍摄地点、水深与日期发给我们,无法确定的会标注「待定」并转给顾问,不会强行给结论。
新物种记录、潜水员的现场影像、以及那些还没被写进图鉴的发现。
每月一封,只发影像与故事,不发广告。随时可退订。